ميكوسوشيناي
المحتويات
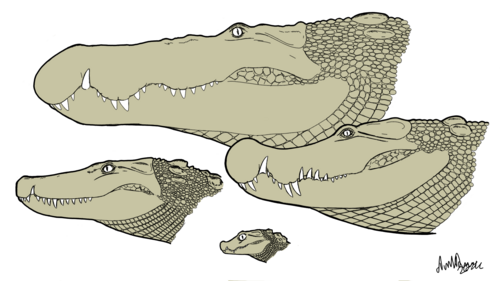
تعريفًا بالموضوع، الميكوسوشيناي هي فرع حيوي منقرض من التماسيح من حقبة الحياة الحديثة في أسترالاسيا. مثلت المجموعة المهيمنة من التماسيح في المنطقة خلال أغلب حقبة الحياة الحديثة، وظهرت لأول مرة في السجل الأحفوري في الفترة الفجرية في أستراليا، ونجت حتى وصول البشر: في البليستوسيني المتأخر على القارة الأسترالية، وخلال العصر الهولوسيني في جزر المحيط الهادئ في فيجي، كاليدونيا الجديدة وفانواتو. وفيما يلي تفاصيل أوسع عن ذلك.
من جهة ثانية، خضعت الميكوسوشيناي لتراجع في أستراليا ما بعد الميوسيني، حيث يُعتقد أن أغلب الأجناس انقرضت بسبب فترة شديدة من القحولة. وبينما تعافت الميكوسوشيناي خلال العصر البليستوسيني، أدى التراجع المستمر في أنظمة المياه العذبة الداخلية والمناطق الأحيائية البرية المرتبطة بها تدريجياً إلى تراجع الفصيلة. بحلول البليستوسيني، لم يتبق سوى جنسي كوينكانا وبالوديريكس يقطنان بر أستراليا الرئيسي، جنباً إلى جنب مع تماسيح حقيقية أحدث. بعد زوال آخر ميكوسوشيناي في البر الرئيسي، نجت المجموعة في فيجي، فانواتو وكاليدونيا الجديدة حتى العصر الهولوسيني. في جميع الحالات، حدث انقراض الميكوسوشيناي على وجه التقريب في نفس وقت وصول البشر، على الرغم من أنه من غير الواضح مقدار الدور الذي لعبوه في هذه الأحداث، إن وُجد. بالنسبة لأنواع البر الرئيسي، يُجادل بأن اختفاءها كان مرتبطاً في الغالب بـ تغير المناخ، مع نمط انقراض يطابق اختفاء مستجمعات المياه ولكن بدرجة أقل مع ظهور البشر. الأمور أكثر تعقيداً بالنسبة للأشكال الجزرية، حيث يتساءل بعض الباحثين عن مدى تداخل ميكوسوكس والبشر حقاً. إذا لعب البشر دوراً في انقراض آخر ميكوسوشيناي، فربما كان ذلك إما بشكل مباشر بسبب فرط الاستغلال أو بشكل غير مباشر أكثر من خلال تدمير البيئة وأنواع مجتاحة مثل الجرذان.
وفي هذا الصدد، تماسيح الميكوسوشيناي هي مجموعة متنوعة تعرض تبايناً كبيراً في الأشكال والأحجام. بعض الأنواع، مثل بارو وبالوديريكس، كانت مفترسات كمينة كبيرة شبه مائية، على الرغم من أن الجنسين اختلفا بدرجة كبيرة في طرق الصيد. ربما كان أسترالوسوشس متوسط الحجم مقاوماً للبرد نسبياً، وتُعرف أنواع مثل ترايلوفوسوشس وميكوسوكس بصغر حجمها. أحد أكثر الميكوسوشيناي تميزاً كان كوينكانا، بجمجمته العميقة (ألتيروستيرال) وأسنانه المسننة الشبيهة بالنصل.
تاريخ الاكتشاف
وفي هذا السياق، هناك بعض التساؤلات حول نمط حياة الميكوسوشيناي. بناءً على شكل الجمجمة، تعتبر الكثير من الأنواع شبه مائية وأغلب الميكوسوشيناي تمتلك مورفولوجيا حوض متحفظة نسبياً، على الرغم من أن عوامل أخرى قد تشير إلى قدرات برية أكبر. عظام العضد أكثر استقامة مما هي عليه في التماسيح الحديثة، مما يسمح لها بأداء ما يسمى بـ المشي العالي بسهولة أكبر. يُنظر عادة إلى ميكوسوكس وترايلوفوسوشس على أنهما أكثر برية، وربما يشبهان الكايمان القزم والتماسيح القزمة، بينما يعرض كوينكانا شكل جمجمة مشابهاً جداً لتماسيح برية مثل السيبيديات والبلانوكرانييديات. في حالة كوينكانا، يعاق هذا التفسير غالباً بسبب النقص شبه الكامل في المواد ما بعد القحفية، باستثناء بعض عظام الحوض المعزولة التي تشير إلى وجود ميكوسوشيناي بأطراف منتصبة في منطقة ريفيرسلي للتراث العالمي، حيث تم العثور على كوينكانا.
ومن جهة أخرى، تاريخياً، اعتُبرت الميكوسوشيناي تماسيح حقيقية (من فصيلة تمساحيات), لكن الأبحاث الحديثة تفضل فكرة أنها إما تباعدت قبل الانقسام بين الجافياليات والتماسيح أو أنها مجموعة شقيقة لـ التماسيح الحقيقية. حتى أن بعض الدراسات الحديثة لعبت بفكرة أن أورينتالوسوشينا، وهي فرع حيوي من التماسيح الصغيرة من العصر الطباشيري إلى الباليوجيني في آسيا، قد تكون جزءاً من الميكوسوشيناي. وبغض النظر عن أصولها، تنوعت الميكوسوشيناي بسرعة بين ظهورها الأول خلال الفترة الفجرية وحدود العصر الأوليغوسيني-الميوسيني، عندما سكنت خمسة أجناس مختلفة من حيث المورفولوجيا في بيئات المياه العذبة وغابات ريفيرسلي.
البرية
إضافةً إلى ذلك، بشكل عام، يميل الإجماع الحالي نحو أن كوينكانا كان لديها عادات برية أكثر، على الرغم من أن المواد ما بعد القحفية ستكون مطلوبة لتأكيد الفرضية بالكامل. يعترف أغلب الباحثين بالمعلومات المحدودة التي يمكن جمعها من مادة الجمجمة وحدها.
من جهة ثانية، الحجة الأساسية ضد نمط الحياة البري لـ كوينكانا تنبع من منشور عام 2002 بقلم ستيفن رو. في هذا العمل، يجادل رو أولاً ضد حجة سابقة لمولنار ويليس بأن الزواحف كانت المفترسات العلوية لأستراليا، مسلطاً الضوء على الندرة النسبية لبقايا ميغالانيا وكوينكانا مقارنة بـ الجرابيات. يجادل رو كذلك بأن كوينكانا كانت ستعتمد بدرجة كبيرة على الماء للحماية، التزاوج أو التنظيم الحراري ويدعي أن الأصابع التي تشبه الحوافر للبلانوكرانييديات كانت أثراً من الحفظ. في حين أن النقطة الأولى لا تزال قابلة للتطبيق، تم دحض النقطة الأخيرة في النهاية من قبل كريستوفر بروتشو، الذي أكد صحة تلك المورفولوجيا. بطبيعة الحال، لا تأخذ حجج رو في الاعتبار بشكل كامل "شكل الحوض الرابع" لشتاين، الذي وُصف بعد 15 عاماً.
ومن جهة أخرى، أكثر من غير تقليدي هي الفرضية القائلة بأن ميكوسوكس تحديداً كان حيواناً شجرياً، ومع ذلك، فإن هذه الفكرة، التي قدمها ويليس لأول مرة في عام 1997، تم دحضها لاحقاً من قبل سكانلون وهي غائبة تماماً في الأدبيات الحديثة بما في ذلك عمل عام 2023 لجورغو ريستيفسكي (الذي شارك فيه ويليس).
في هذا الإطار، يمكن في الواقع العثور على أقدم التلميحات حول هذه الميكوسوشيناي البرية المشتقة في أقدم عضو معروف في الفصيلة: كامبارا. على الرغم من الاعتراف على نطاق واسع بكونها شبه مائية ذات رأس كلاسيكي شبيه بالتماسيح مناسب لمثل هذه الحياة، إلا أن كامبارا تميزت كذلك ببعض التكيفات الغريبة في أطرافها التي كان من الممكن أن تسهل السفر عبر الأرض بسهولة أكبر مقارنة بالتماسيح الحديثة. أظهرت دراسة عظم العضد أن الأطراف الأمامية العلوية كان من الممكن أن تُرجح بقوة أكبر بكثير وستوفر استقراراً أكبر عند المشي، مما يساعد الحيوان على إبقاء جذعه بعيداً عن الأرض أثناء أداء ما يسمى بالمشي العالي. في الوقت نفسه، كانت هذه التكيفات ستؤثر بشكل إيجابي على كل من طول الخطوة وسرعة المشي كذلك. كان مدى حركة الأطراف الأمامية أكبر كذلك مما يُرى في التماسيح الحقيقية التي تسكن أستراليا اليوم.
وفي هذا الصدد، على الرغم من أن أغلب الميكوسوشيناي تُظهر سمات مميزة لكونها حيوانات شبه مائية، وتمتلك جماجم مفلطحة مع اتجاه فتحتي الأنف والعينين للأعلى، إلا أن هناك بعض الأجناس التي قد تشير إلى أن نمط حياة أكثر اعتماداً على الأرض نشأ في بعض فروع الفصيلة.
كذلك، دراسة لاحقة ركزت على الميكوسوشيناي بشكل عام؛ فحصت مواد معينة لـ كامبارا، بارو، "أصنوفة فلورافيل" وما قد يكون إما بارو يافع أو ميكوسوكس؛ تشير إلى أن المجموعة ككل كانت تمتلك عظام عضد عمودية أكثر من التماسيح الحديثة مع مقطع عرضي بيضاوي بدلاً من مستدير. تؤثر هذه العوامل بدرجة كبيرة على الضغط الذي تتعرض له العظام عندما ترفع الحيوانات أجسامها عن الأرض، سواء لمشية منبطحة أو للمشي العالي. تشير الدراسة إلى أن عظام العضد المنحنية للتماسيح الحديثة تعمل على توفير لب أكثر ثباتاً للضغط المحايد بغض النظر عن المشية التي تفترضها وتوفر أماناً أكبر عند الانبطاح. في غضون ذلك، يبدو أن الميكوسوشيناي كان لديها ضغط أساسي أقل لا يرتفع كثيراً عند التبديل من مشية إلى أخرى، مما يجعل المشي العالي أكثر قابلية للتطبيق. يبدو أن التشريح يدعم كذلك فكرة أن الميكوسوشيناي كانت ستكون قادرة على أداء المشي العالي حتى بعد الوصول إلى حجم معين، بينما تتوقف الكثير من التماسيح الحديثة عن التحرك بهذه الطريقة بعد نموها بدرجة كبيرة.
إضافةً إلى ذلك، تُعتبر أنواع الأجناس ترايلوفوسوشس، ميكوسوكس وكوينكانا أكثر برية بشكل شائع، وإن لم تكن بلا منازع، حيث يدعم كل منها خطوط تفكير متعددة. أحد الجوانب الرئيسية لصالح العادات البرية هو شكل الجمجمة. على عكس أغلب الميكوسوشيناي الأخرى بما في ذلك كامبارا، امتلكت كل هذه الأصناف الثلاثة جماجم عميقة (ألتيروستيرال)، مما يعني أن الرأس كان مربعاً وعميقاً نسبياً بدلاً من كونه مفلطحاً.
كذلك، في ميكوسوكس، العيون كبيرة وموجهة نحو جانب الجمجمة بينما تفتح فتحات الأنف أكثر نحو الأمام، في حين أن كلاهما يفتح أكثر نحو قمة الجمجمة في التماسيح شبه المائية، مما يسمح لها بالرؤية فوق سطح الماء حتى لو كانت مغمورة بخلاف ذلك. كانت البيئة كذلك عاملاً، حيث تفتقر جزيرة كاليدونيا الجديدة، حيث عاش ميكوسوكس إينسبكتاتوس، إلى مسطحات كبيرة من المياه العذبة، في حين أشار بالوت وبوفيتو كذلك إلى التنسكبات العضلية المتطورة. يمتلك ترايلوفوسوشس جمجمة مماثلة لـ ميكوسوكس، على الرغم من أن موضع فتحات الأنف غير معروف. أشارت دراسة مواقع ارتباط العضلات إلى أن ترايلوفوسوشس كان يرفع رأسه أعلى بكثير مما هو معتاد بالنسبة للتماسيح، بشكل يشبه ما يُرى في عضرفوطيات أو الكايمان المشمس اليوم. تاريخياً، تمت مقارنة ترايلوفوسوشس بكل من البروتوسوكيات والنوتوسوكيات، وهما مجموعتان بريتان شهيرتان من تمساحيات الشكل في العصر الوسيط. يبدو أن مسوحات الدماغ تقدم كذلك أدلة تجاه الحياة البرية، مع ترابط هوائية الدماغ بشكل خاص مع نمط حياة الحيوان. بحسب ريستيفسكي وزملاؤه، يعرض ترايلوفوسوشس مزيجاً من سمات التماسيح والمجموعات الأكثر قاعدية. يشبه الشكل العام لـ القالب الداخلي أراريبيسوكوس، وتتحمل النسب بين عناصر الأذن الداخلية شبهاً بـ البوروسوكيات والتماسيح الإسفينية. تُقارن الجمجمة عالية الهوائية بشكل إيجابي بالنوتوسوكيات، والجدير بالذكر، الكايمان القزم والتماسيح القزمة من جنس باليوسوكس وأوستيولاي موس. لم تكن هذه المقارنة جديدة وكان قد اقترحها هولت في سنة 2007، الذي اقترح أن ميكوسوكس ربما سكن جداول الغابات المطيرة الصغيرة وخرج أثناء الليل للصيد بالقرب من حافة المياه أو على الأرض.
من جانب آخر، تماماً كما هو الحال مع ميكوسوكس، تعتمد فكرة أن كوينكانا كانت برية بشكل أساسي على المظهر الخارجي للجمجمة، التي هي عميقة وتضم صفوفاً من أسنان الزيفودونت (بمعنى أنها مضغوطة تشبه النصل مع تسننات بارزة على طول حافة القطع). جذبت هذه التشريح مقارنة فورية بـ السيبيدوسوشيات والبلانوكرانييديات، وهما مجموعتان مفهومة بشكل أفضل بكثير من تمساحيات الشكل من العصر الطباشيري إلى الباليوجيني المشهورة بنمط حياتها البري. على الرغم من أن الاستخدام الدقيق لأسنان الزيفودونت غير واضح، إلا أن الكثير من المؤلفين تقدموا باقتراحات بأنها قد تكون مرتبطة بافتراس الفرائس البرية، مطاردة الفرائس على الأرض أو بشكل أوسع أن كوينكانا ملأت مكانة بيئية تشبه تنانين كومودو الحديثة. إحدى القضايا الرئيسية المتعلقة بالعادات البرية المستنتجة لـ كوينكانا هي نقص المواد ما بعد القحفية التي ستكون حاسمة في تأكيد أو دحض هذه الأفكار. في حالة البلانوكرانييديات، يشير وجود مقطع عرضي دائري للذيل (بدلاً من كونه مفلطحاً جانبياً) وأصابع تشبه الحوافر بوضوح إلى العادات البرية، ولكن لا تُعين مثل هذه المواد بشكل قاطع إلى كوينكانا. تتكون أقرب مواد ما بعد القحفية لـ كوينكانا من بعض بقايا الحوض الموصوفة بـ "شكل الحوض الرابع" من قبل شتاين وزملاؤه في سنة 2017. يُعين هذا الحوض من منطقة ريفيرسلي للتراث العالمي مؤقتاً إلى كوينكانا ميبولدي ويرجع ذلك أساساً إلى تشريحه المتخصص. على عكس أشكال الحوض الأخرى التي ناقشها شتاين وزملاؤه (مثل تلك الخاصة بـ كامبارا وبارو)، يشير شكل الحوض الرابع إلى أن الحيوان الذي ينتمي إليه كان يتمتع بوضعية منتصبة ومجرد مشية منبطحة محدودة، تشبه ما يُرى في السيبيدوسوشيات. ومع ذلك، بينما سيكون هذا التفسير مناسباً تماماً للعادات المستنتجة لـ كوينكانا بناءً على جمجمتها، فإن عدم وجود مواد متداخلة يعني أن المادة لا يمكن تعيينها بثقة للجنس حتى يتم العثور على جمجمة مرتبطة بالفعل بمواد ما بعد قحفية.
كذلك، كل هذه التكيفات، على الرغم من كونها مفيدة للمشي على الأرض، لا تُظهر بالضرورة أن الميكوسوشيناي ككل كانت برية، بل تُظهر أنها كانت أكثر تكيفاً للمشي على الأرض دون إبطال أي من تكيفات الحياة المائية. يتم تسليط الضوء على هذا إلى حد ما من خلال تشريح حزام الكتف والحوض، والتي على الرغم من تفضيلها للعادات البرية في حالة واحدة، إلا أنها تظهر بشكل عام قريبة جداً من تلك الموجودة لدى التماسيح الحديثة. في حالة كامبارا تحديداً، يمثل الحوض حالة تواسم متقارب متماثل ويشبه إلى حد كبير حوض الغريالات والقواطير، مع ما يبدو أن الميكوسوشيناي اللاحقة تتباعد إلى أشكال برية أكثر أو تتقارب مع التماسيح الحديثة. فيما يتعلق بأطراف كامبارا، فإن نفس التكيفات المفيدة للحركة على الأرض تجلب كذلك مزايا للسباحة. يشير لوكاس أ. بوكانان، الذي وصف كامبارا تارينا، في أطروحته إلى أن الحيوان لا يُظهر أي تكيفات ملحوظة أخرى للحياة البرية ويلتزم بتشريح تماسيح المياه المالحة والعذبة الحديثة في الكثير من الجوانب. تم الترفيه عن فكرة أن كامبارا كان يمكن أن يمتلك لقمة شظوية وبالتالي حركة أشبه بالمفصل للركبة، ولكن لم يتسن تأكيد ذلك بسبب حفظ المواد الأحفورية. دليل أخير ضد العادات البرية المفرطة في كامبارا هو حقيقة أن أغلب الأفراد معروفون من موقع نفوق جماعي يحفظ نتائج جفاف بحيرة، مما أدى إلى مقتل التماسيح التي سكنتها سابقاً.
ريفيرسلي وبحيرة إيري
وعلى صعيد آخر، انتشرت الميكوسوشيناي الأسترالية إلى الداخل أكثر بكثير بحلول أواخر الأوليغوسيني، حيث سكنت منطقة ريفيرسلي للتراث العالمي في كوينزلاند وبويت مارنتي مارنتي في الإقليم الشمالي، فضلًا عن أجزاء مختلفة أخرى من حوض بحيرة إيري في جنوب أستراليا. كان نوع البيئة الموجودة داخل ريفيرسلي موضوعاً مثيراً للجدل تاريخياً، لكنه يبدو أنه يمثل نوعاً من الغابات التي يبدو أنها خضعت لتغيرات متعددة طوال تاريخ المنطقة. تم اقتراح أن مواقع أواخر الأوليغوسيني وأوائل الميوسيني (مثل لو ليون ووايت هانتر، موطن أصناف مثل ألتراستينيوس، ميكوسوكس وايت هانتيرنسيس، بارو ويكيني وكوينكانا ميبولدي) ستقع في فترة جافة، وبالتالي كانت تهيمن عليها الغابات المفتوحة والأحراش، وربما تضمنت كذلك نباتات صلبة الأوراق وأحراش الكرمة المتساقطة. يُعتقد أن المناخ أصبح أكثر رطوبة خلال المناطق الحيوانية (ب) و(ج)، مما أدى إلى ظهور بيئة غابة مطيرة منخفضة أكثر بروزاً خلال ترسيب موقع رينغتايل (موطن ترايلوفوسوشس، بارو داروي وميكوسوكس ساندرّي). يتم دعم هذا التفسير للبيئة من خلال عوامل مختلفة مثل العدد الكبير للأصناف الشجرية، ثراء الأنواع العام ووجود بعض أصناف الغابات المطيرة مثل ضفادع عش الفقاعات، طائر القيثارة وبعض الخفافيش. في النهاية، يبدو أن البيئة عادت إلى الغابات والأحراش المفتوحة الأكثر جفافاً بحلول الوقت الذي انتقلت فيه ريفيرسلي إلى المنطقة الحيوانية (د).
وعلى صعيد آخر، انتشرت الميكوسوشيناي الأسترالية في الداخل أكثر بكثير بحلول أواخر الأوليغوسيني، حيث سكنت منطقة ريفيرسلي للتراث العالمي في كوينزلاند وبويت مارنتي مارنتي في الإقليم الشمالي، فضلًا عن أجزاء مختلفة أخرى من حوض بحيرة إيري في جنوب أستراليا. لطالما كان نوع البيئة الموجودة داخل ريفيرسلي موضوعاً مثيراً للجدل، لكنه يبدو أنه يمثل نوعاً من الغابات التي يبدو أنها خضعت لتغيرات متعددة طوال تاريخ المنطقة. تم اقتراح أن مواقع أواخر الأوليغوسيني وأوائل الميوسيني ستقع في فترة جافة، وبالتالي كانت تهيمن عليها الغابات المفتوحة والأحراش، وربما تضمنت كذلك نباتات صلبة الأوراق وأحراش الكرمة المتساقطة.
ومن ناحية أخرى، تشمل مواقع أواخر الأوليغوسيني الرئيسية الأخرى التي أنتجت مواد ميكوسوشيناي إتادون، نامبا وتكوين ويباجيري في حوض بحيرة إيري بجنوب أستراليا. كما هو الحال مع ريفيرسلي، وُصفت البيئة البرية بأنها غابة مطيرة استوائية تم استبدالها لاحقاً بغابة صلبة الأوراق جافة. تم تمثيل البيئة المائية بتجمع واسع النطاق من البحيرات الضحلة، التي كانت موطناً لتجمع متنوع من الأوزيات. ومع ذلك، وعلى الرغم من أوجه التشابه البيئية مع ريفيرسلي ومسطحات المياه العذبة الواسعة، فإن هذه التكوينات الجنوبية لا تحفظ سوى ميكوسوشيناي واحدة: أسترالوسوشس كلاركي.
إضافةً إلى ذلك، أدى التباين الصارخ بين حيوانات الميكوسوشيناي المتنوعة في ريفيرسلي بالنسبة للمواقع الجنوبية التي يهيمن عليها أسترالوسوشس إلى دفع بعض الباحثين للتكهن حول سبب هذا الانقسام. في البداية، افترض ويليس أن هذا الانقسام كان ناجماً عن كون المواقع تقع في أحواض تصريف مختلفة، مع عدم قدرة التماسيح على اجتياز مساحة كافية من الأرض للانتشار من واحدة إلى أخرى. ومع ذلك، تم دحض هذه الفرضية لاحقاً من قبل آدم ييتس، الذي وصف مادة أحفورية لـ بارو ويكيني من موقع بويت مارنتي مارنتي داخل حوض بحيرة إيري الشمالي. وبالنظر إلى أن هذا يثبت حقيقة أن كلا الصنفين سكنا نفس الحوض على الأقل، تم اقتراح فرضية أخرى للانقسام الظاهري. يشير ييتس إلى أنه بدلاً من الفصل عن طريق بعض الحواجز الجغرافية، فإن السبب وراء اقتصار بارو على الأجزاء الشمالية من أستراليا والعكس صحيح يكمن في مناخ القارة. يلاحظ ييتس أن بارو لا يوجد في أي مكان جنوب خط عرض 25 درجة جنوباً، بينما يقع أقصى انتشار شمالي لـ أسترالوسوشس عند خط عرض 27 درجة جنوباً. علاوة على ذلك، تنبع السجلات الجنوبية لـ أسترالوسوشس من مواقع عند خط عرض 31 درجة جنوباً، وهو ما سيتوافق مع خط عرض 45 إلى 50 درجة جنوباً خلال الأوليغوسيني، مع مراعاة نظرية الانجراف القاري. هذا خط عرض أعلى بشكل ملحوظ مما تسكنه أي تماسيح حديثة وقد يشير إلى أن أسترالوسوشس كان مقاوماً للبرد بشكل فريد.
من جانب آخر، تتميز جيولوجيا مواقع أواخر الأوليغوسيني وأوائل الميوسيني بدرجة كبيرة بـ صخور كلسية بحيرية ونهرية، والتي جنباً إلى جنب مع الحيوانات (التي لا تضم فقط التماسيح ولكن كذلك السلاحف والأسماك الرئوية) تشير إلى وجود مكون مائي مهم، على الرغم من أن دراسات أخرى جادلت في غياب أنهار وأراضي رطبة واسعة النطاق. ومع ذلك، كانت هناك مسطحات مائية أخرى موجودة بوضوح، ربما في شكل برك غابات وبحيرات. تُعرف برك مماثلة كذلك من مواقع لاحقة داخل ريفيرسلي، مثل موقع رينغتايل، الذي فضلًا عن التماسيح يحفظ كذلك أحافير خلد الماء المنقرض أوبدوردون ديكسوني، سمكة رئوية وسلاحف، مع المكون البري الأساسي لحيوانات المواقع المكون من بوسومات شجرية تعطي المحلة اسمها.
البيئة
إضافةً إلى ذلك، جنس آخر من الميكوسوشيناي متخصص في أخذ فرائس أكبر هو بارو، على الرغم من أن تشريحه مختلف بشكل صارخ. على عكس جماجم بالوديريكس، كامبارا وأسترالوسوشس المفلطحة، توصف جمجمة بارو بأنها عميقة (ألتيروستيرال) وشبيهة بـ ساطور مع أسنان طويلة تحمل تسننات دقيقة. ربما ساعدت هذه الفكوك القوية، وأسنان القطع والتموج الواضح بارو في معالجة عناصر الفرائس الكبيرة والقضاء عليها بسرعة من خلال إلحاق قدر هائل من الصدمات. يتناقض أسلوب الصيد هذا بشدة مع النهج الأكثر نموذجية المتمثل في الإمساك والغرق، مما يشير ربما إلى تفضيل للمياه الضحلة التي تجعل التكتيك الأخير أقل فعالية وأكثر خطورة. يتكهن ويليس وزملاؤه بأن بارو ربما كان قادراً على معالجة فرائس يصل وزنها إلى ويشير الدليل الأحفوري إلى أن بارو تغذت على جرابيات مثل نيوهيلوس وطيور لا تطير مثل إيمواريوس وطيور الركاض.
من جهة ثانية، يمكن رؤية بعض التشريح الأكثر تخصصاً في كوينكانا، مما يشير إلى أن الجنس كان لديه نمط حياة يختلف جذرياً عن الميكوسوشيناي الأخرى. أسنان كوينكانا هي زيفودونت، تشبه تلك الموجودة لدى السيبيدوسوشيات البرية، البلانوكرانييديات والورليات، على الرغم من أن وظيفتها الدقيقة غير واضحة. جادل مولنار بأن تسنن الزيفودونت يشير إلى القدرة على معالجة فرائس أكبر، فرائس برية أو ربما تماسيح أخرى. يرسم كل من بوسبي ويليس مقارنة بتنانين كومودو الحديثة بينما يقترح شتاين وزملاؤه أن تسنن الزيفودونت قد يكون مرتبطاً بعادات الصيد في الجري، مطاردة الفرائس على الأرض بدلاً من نصب كمين لها. يتبع موراي وفيكرز-ريتش نهجاً مماثلاً، لكنهما يخلصان إلى أن كوينكانا كان لا يزال بإمكانها نصب كمين للفرائس على الأرض، ربما من خلال التظاهر بالانتظار بالقرب من المسالك البرية.
وفي هذا السياق، ربما كانت الأسنان الخلفية لـ فوليا من فيجي مناسبة كذلك لتكسير الرخويات الصغيرة وبشرة الحشرات، رغم أنه من الممكن تماماً أنها كانت مفترساً برياً، مستعملة أسنانها النحيفة والمضغوطة للقضاء على الإغوانة العملاقة المحلية والطيور التي لا تطير.
وفي هذا الصدد، يتم اتخاذ هذا النموذج العام خطوة أخرى إلى الأمام بواسطة بالوديريكس الكبير، الذي يتميز كذلك بجمجمة عريضة ومفلطحة، على الرغم من أنها أكثر قوة بشكل ملحوظ من جماجم أسترالوسوشس وكامبارا. بالنظر إلى هذه الحقيقة والحجم الهائل للأكبر بين النوعين، بالوديريكس فينسينتي، تم اقتراح أن هذا الجنس كان متخصصاً في أخذ فرائس أكبر من أقاربه.
ومن جهة أخرى، ربما تكون الميكوسوشيناي الأكثر غموضاً من حيث البيئة هي الأصناف القزمة ترايلوفوسوشس وميكوسوكس. في حالة ترايلوفوسوشس، يبدو أن دراسة ارتباطات العضلات تشير إلى أن الحركة السريعة للرأس جانباً لعبت دوراً في طريقة تغذيتها، ولكنها تعرض كذلك أنها لم تضطر لمواجهة نفس المقاومات مثل التماسيح شبه المائية، مما تسبب في أن تكون العضلات أضعف نوعاً ما. وبالمثل، تم تفسير عضلات ميكوسوكس وايت هانتيرنسيس على أنها تكيف لتمزيق اللحم من الجثث، إما من خلال نفس الحركات الجانبية كما هو مستنتج لـ ترايلوفوسوشس أو باستخدام لف التمساح التقليدي، على الرغم من أنه كان سيكون أقل فعالية بشكل ملحوظ بسبب صغر حجم الحيوان. هذا من شأنه أن يتطابق مع حقيقة أن الاهتزاز يبدو مفضلاً من قبل الأفراد الصغار واليافعين من التماسيح الحديثة. يتم دعم ذلك بشكل أكبر من خلال تكيفات محددة لارتباطات العضلات في ميكوسوكس وايت هانتيرنسيس وحقيقة بسيطة أن العادات البرية المستنتجة للحيوان كانت ستجعل لف التمساح أكثر خطورة بكثير إذا تم تنفيذه على الأرض مقارنة في الماء. ربما كان السحب والرفع كذلك استراتيجية استعملها هذا الحيوان، سواء كان ذلك لتجريد قتل المفترسات الأخرى أو لتمزيق فرائسه الخاصة، فهذا غير واضح.
وفي هذا السياق، توجد اختلافات مهمة أخرى بين أنواع الميوسيني القارية مثل ميكوسوكس وايت هانتيرنسيس المذكورة سابقاً والأصناف الجزرية الأحدث بكثير مثل ميكوسوكس إينسبكتاتوس. في حين أن الأولى امتلكت أسناناً شبيهة بالنصل مناسبة تماماً لقطع اللحم، يبدو أن الأشكال الأحدث قد طورت أسناناً خدية أكثر قوة تبدو أكثر ملاءمة للتعامل مع عناصر الفرائس ذات الصدفات الصلبة. سيشمل ذلك قشريات مختلفة، حشرات وحتى رخويات مثل الحلزون بلاستوستيلوس، الذي يعد شائعاً بشكل خاص في كاليدونيا الجديدة. برسم أوجه تشابه مع التماسيح القزمة والكايمان القزم، اقترح هولت وزملاؤه أن هذه الأشكال الجزرية كان يمكن أن تكون حيوانات ليلية، تتغذى ليلاً بالقرب من حافة الجداول الصغيرة وعلى الأرض.
ومن ناحية أخرى، امتلكت بعض الميكوسوشيناي، وأبرزها كامبارا وأسترالوسوشس، جماجم مفلطحة الخطم متوسطة، مما يعني أن رؤوسها كانت مفلطحة وليست ممدودة أو قصيرة بشكل خاص. هذا التشريح، الذي يُرى كذلك في الكثير من التماسيح الحديثة، مناسب بشكل عام لنمط حياة أكثر عمومية، حيث يُعتقد عموماً أن هذه الحيوانات تتغذى على مجموعة واسعة من الفرائس. كامبارا من بين أفضل الجنسين دراسة، حيث اقترح الباحثون أن أنواع انغلاق الأسنان المختلفة التي تظهر بين أنواع هذا الجنس ترتبط بتغير طفيف في تفضيلات الفرائس. يقترح لوكاس أ. بوكانان أنه من بين أنواع كامبارا الأربعة، ربما كانت الأنواع ذات الأسنان المتشابكة (كامبارا إيمبليكسيدينس وكامبارا تارينا) أكثر تكيفاً للإمساك بالفرائس الكبيرة المكافحة وتقييد حركتها، بينما يمكن استخدام تراكب العضة الذي يظهر في كامبارا مورجونينسيس للقطع والتمزيق. يشير بوكانان كذلك إلى أنه من بين الأنواع ذات الأسنان المتشابكة، كان لدى كامبارا تارينا نتوء خلف مفصلي متطور بشكل استثنائي، مما يتوافق مع عضلات جناحية قوية وبالتالي عضة أقوى. علاوةً على ذلك، كانت العضلات المستعملة في الإمساك والسحق متطورة بشكل جيد كذلك، مما أدى إلى فرضية أن كامبارا تارينا كان مناسباً بشكل خاص لمعالجة فرائس أكبر من أقاربه. على الرغم من ذلك، لا يوجد دليل مباشر يذكر على عادات كامبارا الغذائية، والاستثناء الوحيد هو صدفة سلحفاة تحمل علامات أسنان متميزة لتمساح عُثر عليه في نفس الرواسب مثل بقايا كامبارا. تشير الأنماط المتروكة على صدفة السلحفاة إلى أن كامبارا انخرط في سلوك يُعرف بـ "التلاعب"، وهو فعل عض الفريسة بشكل متكرر بطريقة تجعلها تتماشى مع الأسنان في الجزء الخلفي من الفك، مما يسمح للحيوان بكسر الصدفة القوية. في حالة هذه الأحفورة بالذات، يبدو أن السلحفاة نجت من المواجهة الأولية لتموت بسبب عدوى لاحقاً.
وفي هذا السياق، على الرغم من الطيف الواسع لأشكال الجمجمة التي تظهر عبر الميكوسوشيناي، لم يتم التعرف بثقة بعد على أي أصنوفة كآكلة أسماك ضيقة الخطم تشبه الغريالات الحديثة أو تماسيح المياه العذبة. في حين طُبق هذا التشريح ذات مرة على ألتراستينيوس، أظهرت الاكتشافات الأحفورية اللاحقة أنه كان حيواناً أكثر عمومية بكثير. وفي الوقت نفسه، هارباكوشامبسا، التي وُضعت تاريخياً ضمن الفصيلة في بعض الأوقات، قد فُسرت مؤخراً كنوع من الغريالات لا تختلف عن جونجاماراندو اللاحق. هناك إجابات متعددة محتملة لهذا. فمن ناحية، من الممكن ببساطة أن وجود الغريالات منع الميكوسوشيناي من محاولة التنافس على هذه المكانة البيئية، التي لن تفتح إلا بعد اختفاء الغريالات خلال البليوسيني أو البليستوسيني وستملأها تماسيح المياه العذبة ضيقة الخطم. احتمال آخر هو أن آكل السمك والتكيفات المرتبطة به لم تكن لتشكل بيئة قابلة للحياة جداً في ذلك الوقت. في الوصف الأصلي لـ ألتراستينيوس، يُسلط الضوء على كيف أنه على الرغم من وفرة بيئات المياه العذبة، فإن منطقة ريفيرسلي للتراث العالمي فقيرة في الأسماك الأحفورية، مع اقتراح المؤلفين أن الخطم الضيق كان يمكن استخدامه لصيد الضفادع والفقاريات الصغيرة الأخرى. والجدير بالذكر أن خطم أي من غرياليات أستراليا غير معروف بالكامل، مما يجعل مدى افتراض طول خطمهما غير واضح. أخيراً، تطرح فرضية ثالثة أن الميكوسوشيناي كانت ببساطة غير قادرة على تطوير فكوك طويلة وضيقة. قد يجد هذا سببه في تطور الجنين للحيوان. يُرى وضع مشابه في القواطير، التي تمنعها قيود معينة أثناء التطور من تطوير هذا النوع من شكل الرأس.
ومن جهة أخرى، عبر وجودها، شغلت الميكوسوشيناي وفرة من المكانات البيئية المختلفة في أنظمة المياه العذبة في أستراليا، مطورة أشكال جماجم مختلفة لاستغلال مصادر غذائية متنوعة وتقليل المنافسة. كان هذا ليكون قيماً بشكل خاص في بيئات مثل ريفيرسلي في الأوليغوسيني والميوسيني، حيث سكنت عدة ميكوسوشيناي مختلفة نفس المناطق في نفس الوقت.
العلاقات الخارجية
التاريخ التطوري
ومن جهة أخرى، العلاقات بين الميكوسوشيناي ومجموعات التماسيح الأخرى هي مسألة أخرى شهدت تحولات متكررة عبر الزمن. عندما أُنشئت فصيلة الميكوسوشيداي في عام 1987 من أجل ميكوسوكس، وُضعت الفصيلة أحادية النمط آنذاك ضمن يوسوكيات. ومع ذلك، في ذلك الوقت، كانت دراسة تطور التماسيح لا تزال ضعيفة، وكانت اليوسوكيات تُعتبر مجموعة فرعية من التماسيح، على عكس اليوم. بحلول عام 1993، عندما صِيغ اسم ميكوسوشيناي ليشمل جميع تماسيح أستراليا الأخرى من حقبة الحياة الحديثة المعروفة في ذلك الوقت، وُضع الفرع في فصيلة التماسيح واعتُبر مجرد تحت فصيلة، وهو الرأي الذي ظل بارزاً في الأدبيات في السنوات اللاحقة.
كذلك، اليوم، ومع ذلك، لم يعد هذا الرأي مدعوماً، حيث يتفق التحليل التطوري الحديث عموماً على أن الفرع لا يمثل تحت فصيلة من التماسيح، بل فرعاً قاعدياً أكثر. وفي حين أنه لم يتم الاتفاق بالضبط على المكان الذي تنفصل فيه المجموعة، توجد فرضيتان رئيسيتان. في دراستهما لعام 2018، التي تدمج بيانات مورفولوجية، جزيئية (تسلسل الحمض النووي الريبوزي منقوص الأكسجين)، وعلم وصف طبقات الأرض (عمر المستحاثات)، استعاد لي وييتس الميكوسوشيناي كمجموعة شقيقة لـ لونجيروستر، التي تتشكل من الغريالات الحديثة (والغريالات الزائفة) جنباً إلى جنب مع التماسيح الحقيقية. أسفرت نتائج مماثلة عن شجرتين تطوريتين استعادهما ريستيفسكي وزملاؤه في عام 2023، مع اقتراح أفضل الشجرتين دقة أن الميكوسوشيناي (بما في ذلك أورينتالوسوشينا) انفصلت عن التماسيح الأخرى في وقت ما بعد البلانوكرانييديات ولكن قبل الانقسام بين التماسيح الحقيقية والغريالات.
علاوةً على ذلك، الفرضية الأكثر قبولاً على نطاق واسع هي فكرة أن الميكوسوشيناي، على الرغم من أنها ليست أعضاء في فصيلة التماسيح الحقيقية نفسها، لا تزال تماسيح. باتباع هذه الفرضية، التي استعادها كذلك ريستيفسكي وآخرون في عام 2023، فإنها تتداخل بعمق داخل لونجيروستر كمجموعة شقيقة مباشرة للتماسيح، مع التماسيح الأفريقية "كروكوديلوس" ميجارينوس كأصنوفة شقيقة للفرع المكون من التماسيح الحقيقية والميكوسوشيناي. تم الإبلاغ عن نفس الطوبولوجيا سابقاً بواسطة ريو ومانيون في سنة 2021، وتم تكرارها لاحقاً في منشور عام 2023 من قبل ييتس وريستيفسكي وسالزبوري.
الأصول
من جانب آخر، لا تزال هناك احتمالات أخرى لأصل الميكوسوشيناي في أستراليا. مثلًا، كان بإمكان الميكوسوشيناي نظرياً الوصول عبر البر في حال انتشارها من آسيا إلى أوروبا ثم إلى الأمريكتين أو مباشرة من آسيا إلى أمريكا الشمالية. ومن هناك، كان بإمكانها الانتقال إلى أمريكا الجنوبية، والانتشار إلى القارة القطبية الجنوبية، ودخول أستراليا من الجنوب. ومع ذلك، فإن إحدى القضايا الرئيسية في هذه الفكرة هي الغياب الكامل للمواد الأحفورية للميكوسوشيناي من الأمريكتين والقارة القطبية الجنوبية، مما يجعل الانتشار من آسيا مباشرة إلى أستراليا (أو عبر الهند) الأصل الأكثر ترجيحاً بين الأصلين.
في هذا الإطار، تضع الفرضية الثانية على وجه الخصوص أصل المجموعة في آسيا، مع وصول الميكوسوشيناي الأوائل إلى أستراليا قبل الفترة الفجرية. ومع ذلك، يشير ريستيفسكي وزملاؤه إلى أن الفجوة بين القارتين كانت أكبر بكثير مما هي عليه اليوم، مما يعني أن مثل هذه الرحلة كانت ستتطلب من التماسيح عبور مساحات شاسعة من المحيط، أو على الأقل القيام بقدر كبير من التنقل الوثبي (على الرغم من أن وجود الجزر في هذه الفترة الزمنية ليس مؤكداً). ستستفيد طريقة السفر هذه بدورها من وجود شكل من أشكال تنظيم أسموزي في الميكوسوشيناي الأوائل، وهو ما يُعرف بوجوده في الغريالات والتماسيح الحقيقية. ومع ذلك، لا يمكن تحديد وجود غدد ملحية كما يظهر في هذه الفروع من الأحافير، وباستثناء الأصناف الجزرية من العصر الرباعي، تُعرف جميع الميكوسوشيناي حصرياً من بيئات المياه العذبة الداخلية. ومع ذلك، يشير ريستيفسكي وزملاؤه إلى أن بعض قاطوريات الشكل الموجودة تغامر بدخول البيئات البحرية، بدرجة أقل من التماسيح الحقيقية، على الرغم من افتقارها للغدد الملحية. وبالنظر إلى أن هؤلاء الأسلاف المفترضين للميكوسوشيناي كانوا على الأرجح حيوانات عامة تشبه كامبارا، فمن المحتمل جداً أنها قطعت مسافات طويلة عن طريق السباحة، وربما مع درجة ما من تحمل الملوحة.
علاوةً على ذلك، لقد حجبت الأصول المتغيرة للميكوسوشيناي وكذلك السجل الضعيف لأحافير تمساحيات الشكل من أستراليا أصول الفرع لفترة طويلة. يُمثل سجل تمساحيات الشكل في العصر الطباشيري من القارة فقط بـ كونفراكتوسوشس وإيزيسفورديا اللذان، اعتماداً على المنشور، قد يكونان أعضاء غير يوسوكيين مشتقين للغاية من نيوسوكيات أو من بين أكثر اليوسوكيات قاعدية. وبغض النظر عن ذلك، فإن هذا يجعلها قاعدية بشكل ملحوظ أكثر من الميكوسوشيناي اللاحقة، التي توضع بثقة بين التماسيح التاجية. باتباع الأشجار الأكثر شيوعاً التي لا تكون فيها الأورينتالوسوشينات ميكوسوشيناي، نشأ الفرع في أواخر الداني، قبل قرابة 66 مليون سنة وقرابة 10 ملايين سنة قبل ظهورها الأول المؤكد في السجل الأحفوري من خلال كامبارا. ومع ذلك، إذا كانت أورينتالوسوشينا فرعاً فرعياً من الميكوسوشيناي، فإن هذا سيدفع أصول الفرع إلى العصر الطباشيري.
النهضة
من جهة ثانية، على الرغم من هذه الاكتشافات المبكرة، ظلت الأبحاث حول الأجناس التي نصنفها الآن كميكوسوشيناي هادئة خلال النصف الأول من القرن العشرين، مع نقص الأبحاث المنشورة التي تركز على تماسيح أسترالاسيا خلال منتصف القرن مما أدى إلى فجوة استمرت 40 عاماً. انتهت هذه الفترة في عام 1977 مع منشورات ماكس هيكت ومايكل آرتشر ورالف مولنار، الذين أبلغوا جميعاً عن مواد أحفورية جُمعت من رواسب الكهوف في شمال كوينزلاند. شملت هذه المواد بقايا مجزأة وأخرى محفوظة بشكل أفضل، بما في ذلك منقار مكتمل على وجه التقريب تم استرداده من كهف تي تري. لوحظت المادة بسرعة لمورفولوجيتها المميزة، حيث تحمل بعض الشبه بتماسيح السيبيدوسوشيا والبلانوكرانييديات البرية. بعد اكتشاف المزيد من الشظايا الأحفورية، سُميت الأصنوفة كوينكانا في سنة 1981، على الرغم من أن التفسيرات المبكرة ربطتها بالبلانوكرانييديات الباليوجينية بدلاً من باليمناركوس الراسخ بالفعل.
من جانب آخر، في عام 1982، بعد عام واحد فقط، نشر مولنار ورقة بحثية ركزت على باليمناركوس، محاولاً مراجعة الجنس عن طريق إنشاء عينة نمطية للتعويض عن حقيقة أن دي فيس لم ينشئ نموذج نوعي. في الوقت نفسه على وجه التقريب، صدرت تقارير عن مواد أحفورية لتماسيح من كاليدونيا الجديدة، أدت إلى وصف ميكوسوكس من قبل علماء الحفريات الفرنسيين جان كريستوف بالوت وإريك بوفيتو في عام 1987. وكما هو الحال مع كوينكانا، حجبت المورفولوجيا المميزة لـ ميكوسوكس في البداية علاقتها بالتماسيح الحديثة، حيث وضعها الفريق في فصيلة الميكوسوشيدايالمسماة حديثاً، والتي وضعوها كفرع مبكر من يوسوكيات ومجموعة شقيقة للمجموعات الثلاث الموجودة من التماسيح (التماسيح، الجافياليات، القواطير والكايمان).
العمل الحديث
وفي هذا السياق، تم استبدال مفهوم إشعاع تماسيح أستراليا الثالثي بأسرة الميكوسوشيناي في سنة 1993، التي حددها ويليس ومولنار وجون سكانلون كـ تحت فصيلة من التماسيح. تم نقل الاسم عمداً من ميكوسوشيداي أحادية النمط لبالوت وبوفيتو، حيث قصد ويليس وزملاؤه الحفاظ على أقدمية الاسم مع تكييفه ليعكس بدقة أكبر موقعها المفترض بين التماسيح في ذلك الوقت. من حيث التكوين، كانت الأصناف الجديدة الوحيدة المضمنة هي كامبارا، التي سُميت في نفس الورقة، وميكوسوكس، التي تحمل اسم الفرع. الميكوسوشيناي الأخرى التي تم التعرف عليها خلال التسعينيات كانت ترايلوفوسوشس، الذي سُمي بعد فترة وجيزة من وصف الفصيلة في 1993، إلى جانب ثلاثة أنواع إضافية من كوينكانا، نوعان من بارو، ونوع واحد من كل من كامبارا، باليمناركوس، وميكوسوكس.
من جهة ثانية، وضعت السبعينيات والثمانينيات الأساس لما سيصبح فترة من الاهتمام المتزايد بـ تماسيح أسترالاسيا خلال التسعينيات وأوائل العقد الأول من القرن الحادي والعشرين. إلى جانب هيكت وآرتشر ومولنار، نشر مجموعة متنوعة من المؤلفين الآخرين عن مواد أحفورية لتماسيح خلال هذا الوقت، والعديد منهم أصبحوا غزيري الإنتاج في دراسة الميكوسوشيناي. يشمل هؤلاء باول ويليس، ستيفن سالزبوري وديرك ميغيريان. بعد وصف بارو، بدأ العلماء في التعرف على السمات المشتركة بين تماسيح أستراليا الأحفورية، حيث اقترح ويليس وزملاؤه وجود ما أطلقوا عليه إشعاع تماسيح أستراليا الثالثي. تضمن هذا المفهوم في البداية أصناف البر الرئيسي الثلاثة بارو، كوينكانا وباليمناركوس وتم توسيعه لاحقاً ليشمل أسترالوسوشس كذلك، الذي سُمي بعد عام واحد في 1991.
ومن جهة أخرى، انتقل هذا المسار على وجه التقريب إلى العقد الأول والعقد الثاني من القرن الحادي والعشرين، حيث شهد وصف نوعين آخرين من كامبارا، ووصف نوعين آخرين من ميكوسوكس، إلى جانب أجناس جديدة تماماً مثل فوليا، كالسيفرونس، وألتراستينيوس. حدثت طفرة أخرى في الأبحاث خلال أواخر العقد الثاني وأوائل العقد الثالث من القرن الحادي والعشرين مع نشر أوراق بحثية متعددة بقيادة جورغو ريستيفسكي، الذي تشمل أعماله إصلاحاً شاملاً لجنس باليمناركوس، صاغ على إثره الاسم الجديد بالوديريكس ليحل محله من أجل جلب الاستقرار للأصنوفة، ودراستين عن جمجمة ترايلوفوسوشس، وملخص لأبحاث تماسيح أسترالاسيا شارك في تأليفه الكثير من الباحثين الآخرين الذين شاركوا سابقاً في أبحاث الميكوسوشيناي. شهد عام 2023 وصف بارو إيلوينبيني، الذي كان يُعرف سابقاً فقط باسم بارو ألكوتا، بينما شهد عام 2024 إعادة تفسير لـ ألتراستينيوس، حيث خلصت إلى أنه مرادف لـ بارو هوبري.
المجموعات السكانية الجزرية
في هذا الإطار، لا يقل وجود الميكوسوشيناي في جزر المحيط الهادئ البعيدة خلال البليستوسيني والهولوسيني غموضاً عن أصول المجموعة. على الرغم من معرفة أمثلة متعددة؛ فوليا من فيجي، ميكوسوكس كاليوكاسي من فانواتو، وميكوسوكس إينسبكتاتوس من كاليدونيا الجديدة؛ لا يوجد اتفاق حول كيفية وصول هذه الحيوانات إلى هناك من البر الرئيسي لأستراليا. تماماً كما هو الحال في المناقشات حول الاستعمار الأصلي لأستراليا من قبل الفرع، تلعب مسألة التنظيم الأسموزي وتحمل الملوحة دوراً عند التكهن بكيفية استعمار هذه الجزر البعيدة. اقترح سالزبوري وزملاؤه سابقاً أن ميكوسوكس ربما كان أكثر تحملاً للملوحة بسبب نقص مصادر المياه العذبة الدائمة في كاليدونيا الجديدة، ومع ذلك، بافتراض أن الجنس كان أكثر برية كما يُتكهن بشكل متكرر، ربما كان غياب المياه العذبة أقل أهمية.
وفي السياق ذاته، تقترح فرضية بديلة أن الميكوسوشيناي وصلت إلى فيجي، فانواتو وكاليدونيا الجديدة من خلال فعل الطوف (حملها إلى هناك عن طريق التشبث بالخشب الطافي وهياكل مماثلة) أو التنقل الوثبي. كان هذا الأخير سيستفيد بشكل خاص من انخفاض مستويات سطح البحر خلال هذه الفترة الزمنية، مما يربط سلاسل الجزر ويوفر محطات محتملة على طول الطريق. في حين أن هذا الانتشار كان يمكن أن يحدث في وقت مبكر من الأوليغوسيني، فمن المرجح أن ميكوسوشيناي الجزر كانت تطوراً أحدث بكثير.
الانقراض
وعلى صعيد آخر، بينما انقرضت ميكوسوشيناي البر الرئيسي خلال البليستوسيني، استمرت الأصناف الجزرية المعزولة في البقاء، ربما حتى الهولوسيني. غالباً ما يرتبط انقراض ميكوسوكس بوصول ثقافة لابيتا في جنوب المحيط الهادئ، وهو ما يدعمه حقيقة أن نطاق الجنس تداخل مع المستوطنات البشرية وبسبب ارتباط بقايا ميكوسوكس كاليوكاسي بالأدوات البشرية في موقع أرابوس الأثري على إيفات. تتراوح العوامل المساهمة في اختفاء ميكوسوشيناي الجزر من الصيد المباشر للتماسيح إلى تدمير الموائل وإدخال الأنواع الغازية مثل الخنازير والجرذان. ومع ذلك، فإن هذه الفكرة ليست بلا منازع تماماً، حيث يشير أندرسون وزملاؤه إلى أن أغلب بقايا ميكوسوكس إينسبكتاتوس تبدو وكأنها ترسبت قبل وصول البشر. كما يسلطون الضوء على عدم وجود دليل مباشر على تفاعلات التماسيح والبشر (مثل علامات الذبح). من ناحية أخرى، تحمل أحافير ميكوسوكس كاليوكاسي الموجودة في المواقع الأثرية علامات قضم الجرذان، وعُثر على أحافير أُشير إليها مؤقتاً بـ فوليا كمحتويات أفران. من المحتمل أن آخر الميكوسوشيناي انقرضت قبل نحو 3000 عام، مع وجود بعض المواد المتنازع عليها التي تشير إلى أن ميكوسوكس ربما عاش حتى وقت قريب يصل إلى 1720 عاماً.
علم الأحياء القديمة
من جانب آخر، في كلتا الحالتين المدرجتين أعلاه، يبدو أن التدخل البشري لم يكن عاملاً، حيث جادل هوكنول وزملاؤه بأن الحدثين تزامنا ببساطة، مستشهدين بحقيقة أن انقراضات الحيوانات الضخمة في البر الرئيسي لأستراليا سارت في الاتجاه المعاكس لما كان سيُشتبه فيه إذا كان البشر هم السبب الدافع. يسلط ريستيفسكي وزملاؤه الضوء كذلك على أن بعض أصغر بقايا كوينكانا قد تشير إلى أن البشر والميكوسوشيناي تداخلوا لنحو 40000 عام، وهو ما يتعارض مع فكرة أن الميكوسوشيناي تم القضاء عليها بسرعة من قبل البشر الواصلين حديثاً. يسلط الفريق الضوء كذلك على أن التفاعلات بين البشر وتماسيح البر الرئيسي لم تُسجل في السجل الأحفوري حتى الهولوسيني، بعد انقراض الميكوسوشيناي. ومع ذلك، فهم لا يستبعدون العامل البشري في اختفائها تماماً، مستشهدين بآثار ثانوية مختلفة ربما تكون قد أثرت على البيئة وربما كانت عوامل مساهمة، مثل حرق ثقافي.
ومن ناحية أخرى، ربما أثر هذا الجفاف كذلك على الأشكال الأكثر برية مثل كوينكانا. على الرغم من نمط حياتها المستنتج، لا يزال يتم العثور على أعضاء الجنس بشكل شائع في القرب من المياه العذبة ومن المحتمل أنها سكنت بيئات أكثر حراجة. أدت قحولة أستراليا إلى انهيار أنظمة الغابات المطيرة في القارة منذ نحو 50000 عام وبحلول 44000 عام مضت بدأت الحرائق في الظهور بشكل متكرر أكثر من ذي قبل. حتى قبل هذه الأحداث، يلاحظ المؤلفون تحولاً من أحراش الكرمة إلى بيئات أكثر انفتاحاً خلال أواخر البليوسيني وأوائل البليستوسيني، متزامناً مع انخفاض في مواد كوينكانا المعروفة.
وفي هذا الصدد، على الرغم من حقيقة أن الميكوسوشيناي تعافت في البداية من القحولة التي تسببت في التحول الحيواني بين الميوسيني والبليوسيني، إلا أن المجموعة استمرت في المعاناة من آثار التبريد العالمي وانجراف أستراليا المستمر نحو الشمال طوال فترة البليستوسيني. تم الشعور بهذا التغير التدريجي في المناخ عبر أغلب مجموعات الحيوانات الضخمة التي سكنت أستراليا في ذلك الوقت، حيث عانت الميكوسوشيناي شبه المائية مثل بالوديريكس أكثر من غيرها من اختفاء أنظمة الأنهار الداخلية. يكتب هوكنول وزملاؤه أن حوض بحيرة إيري كان من بين أول الأنظمة التي تدهورت بسرعة منذ قرابة 48000 عام، تلتها أنظمة أخرى بوقت قصير في الثمانية آلاف عام التالية. انخفض هطول الأمطار إلى مستويات أقل بكثير من مستويات اليوم، مما أدى إلى استنزاف الأنظمة لإمدادات المياه الخاصة بها. لم يتغير هذا حتى 30000 عام مضت، عندما كان الوقت قد فات لتعافي الأنظمة. بينما تم طرح فرضية بأن أعضاء جنس تمساح يمكن أن يكونوا قد تراجعوا إلى المياه الساحلية، ونجوا بسبب تنظيمهم الأسموزي، بينما كانت الميكوسوشيناي الأكثر اعتماداً على المياه العذبة مثل بالوديريكس ستموت مع جفاف موائلها. أصغر بقايا مؤرخة بشكل موثوق للميكوسوشيناي في البر الرئيسي لأستراليا هي سن (QMF59869) يعود تاريخها إلى ما لا يقل عن 20000 عام، والتي تنتمي إلى ميكوسوشيناي ذات أسنان ثلمة، ربما بالوديريكس.
أورينتالوسوشينا
من جهة ثانية، ومع ذلك، هناك القليل من الأدلة التي تدعم هذا التجميع في الواقع. تم تحديد خمسة تواسم مشتق وتواسم مشتق متماثل محتملة في الأشجار التي تظهر أورينتالوسوشينا كأعضاء في الميكوسوشيناي، على الرغم من أن أياً منها ليس حصرياً لهذه المجموعات ولم يتم تحديده في جميع الأعضاء المدرجين. كما يتم مشاركة الكثير من السمات المورفولوجية الأخرى بين ميكوسوشيناي معينة وأورينتالوسوشينات، لكنها إما موجودة بشكل غير متسق أو منتشرة بين التماسيح، خاصة بين قاطوريات الشكل. علاوةً على ذلك، استعادت بقية التحليلات الثمانية ميكوسوشيناي أكثر تقليدية، بينما تقاربت أعضاء أورينتالوسوشينا مع القاطوريات. يخلص ريستيفسكي وزملاؤه إلى أن الأدلة لدعم هذه الفرضية ضعيفة، سواء من الناحية التطورية أو المورفولوجية، ولكن ينبغي مع ذلك استكشافها بمزيد من التفصيل.
وفي السياق ذاته، ضمن هذه الطوبولوجيا، يتم تجميع أورينتالوسوشينات في الغالب معاً لتشكيل فرع حيوي أحادي النمط الخلوي خاص بها والذي يعمل كمجموعة شقيقة للميكوسوشيناي صغيرة الجسم. يشمل هذا الفرع أجناس كرابيسوشس، أورينتالوسوشس، جيانغشيسوشس وإيواليجيتور، ولكن ليس دونجنانوسوشس، الذي يعد أقرب إلى أصناف الميكوسوشيناي التقليدية. لم يكن بروتو أليجاتور جزءاً من الفرع كذلك، ولكن على عكس دونجنانوسوشس، فإن هذا يتعلق بكون الحيوان قد استُعيد كـ يوسوكيات قاعدي بدلاً من كونه ميكوسوشيناي. هناك تباعد ملحوظ آخر عن التفسير التقليدي للميكوسوشيناي يتعلق بـ أسترالوسوشس وكامبارا، وكلاهما استُعيدا كغير ميكوسوشيناي. إلى جانب تغيير التكوين الداخلي للفرع، فإن الأشجار التطورية التي تستعيد أورينتالوسوشينا داخل الميكوسوشيناي تعيد كذلك ترتيب كيفية ارتباط المجموعة بالتماسيح الأخرى. في حين أن الميكوسوشيناي ككل ترتبط بصلة قرابة أبعد بالتماسيح الحقيقية في هذه الأشجار، يظل أسترالوسوشس وكامبارا حليفين وثيقين لـ تماسيح الشكل. على وجه التحديد، استُعيد أسترالوسوشس كأكثر التماسيح قاعدية في كلا التحليلين، بينما استُعيد كامبارا كأصنوفة شقيقة مباشرة لـ تمساح.
وفي السياق ذاته، فضلًا عن الطوبولوجيا الأكثر شيوعاً التي استعادها ريستيفسكي وزملاؤه، فقد أنتجوا كذلك شجرتين تطوريتين تمثلان التفسيرين الأكثر حداثة للمجموعة. تتميز هذه الأشجار بشكل بارز بالفرع الحيوي أورينتالوسوشينا (Orientalosuchina)، وهي تماسيح عاشت خلال العصر الطباشيري والعصر الباليوجيني في آسيا، باعتبارها متداخلة بعمق داخل الميكوسوشيناي. في كلتا الشجرتين، تنقسم الميكوسوشيناي إلى فرعين، وهي ميزة تشترك فيها مع تحليلات أخرى. يتضمن التقليدي من هذه الفروع أصنافاً متنوعة متوسطة إلى كبيرة الحجم من القارة الأسترالية، وهي كالسيفرونس، كوينكانا، بارو وبالوديريكس، ولا تختلف عن الأشجار الأخرى التي استعادها ريستيفسكي وآخرون. وفي الوقت نفسه، يتضمن الفرع الآخر أورينتالوسوشينا وأصنافاً صغيرة الجسم وكذلك أصنافاً جزرية، وبعبارة أخرى: ألتراستينيوس، ترايلوفوسوشس، فوليا وميكوسوكس.
شكل الجمجمة
إضافةً إلى ذلك، يُعد الزيفودونت الحقيقي، إلى جانب جمجمة أكثر عمقاً، من السمات المميزة لجنس كوينكانا. كما هو الحال في بارو، فإن جمجمة كوينكانا تكون شبه منحرف بشكل واضح في المقطع العرضي وأعمق بشكل ملحوظ من جماجم ميكوسوشيناي الأكثر عمومية والتماسيح الحديثة. تُقارن جمجمة كوينكانا عموماً بجماجم السيبيدوسوشيات والبلانوكرانييديات، حيث تكون جمجمة كوينكانا فورتيروسترم أعرض بشكل واضح وتشبه الأولى، بينما تكون جمجمة كوينكانا تيمارا أقرب إلى الثانية. يكاد يكون التموج غير موجود في كوينكانا فورتيروسترم، مع خطم مستقيم على وجه التقريب في هامشه السفلي، باستثناء ثلم خلف القادمة. الأسنان شبيهة بالنصل، ومضغوطة جانبياً وزيفودونت في أغلب الأنواع، حيث تكون الحواف مزينة بسلسلة من التسننات البارزة. على عكس التسننات الدقيقة الموجودة في بارو، فإن السنينات التي تشكل التسننات على أسنان كوينكانا مفصولة بـ ثلام متميزة. يختلف عدد السنينات، حيث تمتلك كوينكانا تيمارا تسننات أدق بسبب امتلاكها سنينات أكثر مقارنة بـ كوينكانا فورتيروسترم، بينما تفتقر كوينكانا ميبولدي إليها تماماً.
كذلك، إحدى أكثر سمات الميكوسوشيناي وضوحاً هي النطاق الواسع لأشكال الجماجم الموجودة عبر الفصيلة. في أبسط صورها، تشبه الميكوسوشيناي التماسيح الحديثة إلى حد كبير، حيث تمتلك أصناف مثل كامبارا، ألتراستينيوس، وأسترالوسوشس جماجم مثلثة مفلطحة الخطم، مما يعني أنها مسطحة، مع اتجاه فتحتي الأنف والعينين للأعلى في الغالب. تختلف تفاصيل هذا التعدد الشكلي بين الأصناف، كما يظهر بين المعاصرين كامبارا إيمبليكسيدينس ذو الخطم الضيق نسبياً وكامبارا مورجونينسيس ذو الخطم الأكثر عرضاً. كما هو الحال مع الكثير من التماسيح الحديثة، تتميز الجماجم بدرجات متفاوتة من التموج، وهو ما يصف أنماط التضيق التي تمنح الخطم مخططاً متعرجاً إلى حد ما. يبرز بشكل خاص ثلم يتشكل خلف قادمة الفك العلوي الذي يستقبل السن الرابع للفك السفلي عند انغلاق الفكين. وفي هذا الصدد، يتميز أسترالوسوشس بكون هذا السن الرابع للفك السفلي محاطاً بالكامل على وجه التقريب، مع وصف الثلم بشكل أدق كحفرة شبه مغلقة. يظهر انحراف آخر عن النمط المفلطح للخطم في بالوديريكس، الذي، على الرغم من كونه مفلطح الخطم كذلك، يمتلك شكل جمجمة أعمق وأكثر قوة مع خطم أعرض تناسبياً من ميكوسوشيناي مفلطحة الخطم الأخرى.
وفي السياق ذاته، تجمع أعضاء جنس بارو بين الجمجمة المثلثة الشكل والتموج القوي الموجود في الكثير من الأشكال العامة مع مورفولوجيا جمجمة أكثر عمقاً (ألتيروستيرال)، مما يجعل رؤوسها أعمق بكثير من رؤوس ميكوسوشيناي الأخرى. يكون التموج قوياً بشكل خاص في بارو وتُوصف الأسنان بأنها متضخمة ومضغوطة جانبياً. تحمل أسنان اثنين من الأنواع، ب. داروي وب. إيلوينبيني، تسننات دقيقة على طول حواف القطع. دفع هذا بعض المنشورات المبكرة للإشارة إليها باسم زيفودونت، على الرغم من أن الأوراق اللاحقة تفضل مصطلح مُسنن للتمييز بينها وبين أسنان الزيفودونت الحقيقية.
وفي هذا السياق، يظهر النمط المورفولوجي الرابع الرئيسي للجمجمة في الميكوسوشيناي لدى الأنواع القزمة ترايلوفوسوشس وميكوسوكس ويقع كذلك ضمن فئة الجماجم العميقة، بينما يكون في الوقت نفسه قصيراً (brachycephalic). امتلكت هذه الأصناف جماجم مربعة ذات عيون كبيرة تشبه إلى حد ما الكايمان القزم والتماسيح القزمة، فضلًا عن حيوانات منقرضة مثل ثيريوسوشس، بروتوسوكس، ومختلف النوتوسوكيات. لا تُعرف أي أسنان لـ ترايلوفوسوشس، بينما يبدو أن أسنان ميكوسوكس كانت ذات مورفولوجيا مختلفة اعتماداً على النوع. تعرض الأنواع القارية ميكوسوكس وايت هانتيرنسيس وميكوسوكس ساندرّي أسناناً شبيهة بالنصل، بينما كانت الأسنان الخلفية للأنواع الجزرية ميكوسوكس إينسبكتاتوس ثلمة ومستديرة.
ييتس، ريستيفسكي وسالزبوري، 2023
ريستيفسكي وآخرون (معدل من قبل ييتس وشتاين، 2024)
وعلى صعيد آخر، يُمكن العثور على تباين صارخ مع هذه السلالات المتشابهة نسبياً في دراسة أجريت عام 2021 بواسطة جوناثان ريو وفيليب د. مانيون. أبرز الاختلافات عن السلالات المذكورة أعلاه هي مواضع أسترالوسوشس وكوينكانا، اللذين لم يتم استعادتهما كميكوسوشيناي في هذه الدراسة. وُضع أسترالوسوشس خارج نطاق التماسيح واستُعيد كوينكانا كـ كروكوديلين حقيقي، شقيق لـ "كروكوديلوس" ميجارينوس. في المقابل، وُضع الجنس الصيني "أسياتوسوشس" نانلينجينسيس ضمن فرع من الميكوسوشيناي جنباً إلى جنب مع شبه عرق كامبارا. ومع ذلك، فإن العناصر الأخرى أكثر تشابهاً مع دراسات ييتس وريستيفسكي وزملائهم. يظل كامبارا ميكوسوشيناي قاعدياً ويمكن ملاحظة فرع قزم متميز، تشكل في هذه الحالة بواسطة ميكوسوكس، ترايلوفوسوشس وألتراستينيوس. والجدير بالذكر أن هذه الدراسة تسبق إعادة تفسير عام 2024 لـ ألتراستينيوس وبالتالي تتضمن كذلك "بارو هوبري" كأصنوفة منفصلة، على الرغم من أن كلاهما يقع ضمن الفرع القزم.
مواقع أوسط الميوسيني - البليستوسيني
من جانب آخر، خلال البليستوسيني، تسببت القحولة في حدث انقراض آخر بين الميكوسوشيناي. بالنظر إلى تفضيل المجموعات لأنظمة المياه العذبة الداخلية في أستراليا، أدى انهيار تلك الأنظمة والتغير المصاحب نحو بيئات أكثر انفتاحاً إلى القضاء على كل من أصناف شبه مائية مثل بالوديريكس وكذلك كوينكانا الأكثر برية. على الرغم من أن هطول الأمطار زاد في النهاية مرة أخرى، واستقر عند مستويات الهطول التي تظهر اليوم، إلا أن هذا كان متأخراً جداً لإنقاذ أنظمة المياه العذبة الداخلية لـ أستراليا.
إضافةً إلى ذلك، سجل أوسط وأواخر الميوسيني للميكوسوشيناي معروف بشكل أساسي من مواقع بولوك كريك (طبقات كامفيلد) وموقع ألكوتا الأحفوري على التوالي. تم تفسير الأول على أنه غابة كرمة جافة محتملة محاطة بأحراش وغابات أكثر انفتاحاً، تقع وسط سهل فيضي أكبر تميز بأنظمة مياه عذبة متنوعة مثل الأنهار بطيئة الحركة، البحيرات الضحلة موسمياً، البرك ومستنقعات الأنهار المهجورة، التي كانت موطناً لحيوانات واسعة النطاق من الأسماك الصغيرة وبطنيات القدم في المياه العذبة. يبدو أن التماسيح كانت مفصولة بتفضيلات الموائل، مع وجود الغرياليات هارباكوشامبسا في مياه أعمق مثل أجزاء من النهر المتعرج والمستنقعات بينما يبدو أن بارو الميكوسوشيناي فضلت الجداول بطيئة الحركة بحسب أسلوب الصيد الذي اقترحه ويليس وزملاؤه. تشارك ألكوتا الكثير من حيواناتها مع بولوك كريك، لكنها أصغر سناً بشكل ملحوظ وتُظهر انخفاضاً ملحوظاً في أصناف المياه العذبة وضفاف الجداول، التي انتقلت من تشكيل قرابة نصف حيوانات بولوك كريك إلى ربع حيوانات ألكوتا فقط، وهو انخفاض من المرجح أن يكون مرتبطاً بالقحولة المستمرة لأستراليا خلال هذا الوقت. ومع ذلك، يُعتقد أن الموقع كان بحيرياً بطبيعته، ويضم مسطحات مائية دائمة تغذيها الينابيع التي ربما توسعت في أوقات زيادة هطول الأمطار لتشكل بحيرة ضخمة ولكن ضحلة جداً. ربما تميزت المناطق الأحيائية البرية في ألكوتا بالسافانا والغابات الموضعية بحسب موراي وميغيريان، بينما يقترح ماو وريتالك أن البيئة كانت تتكون بشكل أساسي من الغابات المفتوحة وغابات الأروقة، مع كون الأعشاب نادرة إلى حد ما.
في هذا الإطار، ومع ذلك، نجت الميكوسوشيناي خلال هذه الفترة في مناطق أقل تأثراً من أستراليا وتنوعت مرة أخرى خلال البليوسيني. تشمل أصناف هذه الفترة الزمنية بالوديريكس وكالسيفرونس وكذلك كوينكانا، التي نجت من التحول الحيواني بين الميوسيني والبليوسيني. ومع ذلك، باستثناء كوينكانا التي ربما تكون أكثر برية، ظلت هذه الأشكال الجديدة تعتمد إلى حدّ كبير على المياه العذبة. تُعرف ميكوسوشيناي البليوسيني من بلاف داونز (تكوين ألينجهام) في كوينزلاند، من بين أماكن أخرى. تم تفسير بلاف داونز على أنها تحفظ بيئة مشابهة لـ متنزه كاكادو الوطني اليوم، حيث اقترح طومسون وماكنيس وجود غابات مطيرة ضفافية أو أحراش كرمة. ربما تكون البيئات المائية قد تألفت من أنهار، جداول وبحيرات كما يشير وجود عدة أنواع من سلاحف شيليد، زقات وإوز قزم. إلى الجنوب، استمر حوض بحيرة إيري كذلك في دعم مجموعات الميكوسوشيناي، مشاركاً كوينكانا مع بلاف داونز وحافظاً كذلك على عظام كالسيفرونس كتماسيح المياه العذبة في المناطق. تكوين تيراري أشد جفافاً بشكل ملحوظ من بيئة التكوينات الميوسينية الأساسية التي سكنها أسترالوسوشس، لكنها مع ذلك أكثر رطوبة بكثير مما هي عليه المنطقة اليوم. ربما كانت تأوي مراوح دلتا، بحيرات وسهول فيضية، وكانت موطناً للعديد من أصناف المياه العذبة بخلاف التماسيح، بما في ذلك البط، النحام، الزقات، الغاق، طيور البلشون والبجع. ومع ذلك، فإن تكوين تيراري يجسد قحولة أستراليا، مع مسطحات المياه العذبة الخاصة بها أقل اتساعاً من بحيرات تكوينات إتادونا ونامبا التي سبقتها. يُعد تكوين تيراري وكالسيفرونس علاوة على ذلك مثالين رئيسيين للتهديد الذي استمرت القحولة في تشكيله للميكوسوشيناي، حيث تمثل المحلة النوعية لـ كالسيفرونس حفرة مياه جفت في حالة جفاف، مما أدى إلى مقتل أصناف المياه العذبة التي عاشت فيها.
وعلى صعيد آخر، أحد الأشياء التي أبرزها كلا الموقعين هو تأثير تغير المناخ الذي واجهته أستراليا خلال الميوسيني. يبدو أن وجود معادن معينة، وهي المتبخرات ورواسب الكربونات الحجرية، يشير إلى أن بولوك كريك خضعت لفترات من الظروف الجافة، وربما حتى شبه القاحلة. تشير الرواسب كذلك إلى أن هذه المعادن لم تتشكل في حدث واحد، بل بالتسلسل، ربما بسبب الظروف المتغيرة موسمياً التي تسببت في حالات الجفاف. وبالمثل، على الرغم من تغذيتها بالينابيع، كانت أنظمة المياه العذبة في ألكوتا عرضة للجفاف كذلك. يدعم الحفظ الأحفوري هذه الفكرة، مع ترسب بعض البقايا في ألكوتا أثناء "تربيط حفرة المياه"، عندما تتركز الحيوانات وتموت حول مسطحات المياه التي تتقلص ببطء، مع سحق الناجين لبقايا المتوفين. يُطرح فرضية أن فترة شديدة من القحولة كانت مسؤولة عن انقراض أغلب مجموعات ميكوسوشيناي الأوليغوسيني والميوسيني نحو نهاية الميوسيني.
وعلى صعيد آخر، كانت حيوانات مثل ميكوسوكس إينسبكتاتوس هي آخر الميكوسوشيناي، وسكنت الجزر الاستوائية في جنوب المحيط الهادئ مثل فانواتو، فيجي وكاليدونيا الجديدة. ربما عاشت في الغابات المطيرة لهذه الجزر، وقضت حياتها في أو بالقرب من جداول الغابات المطيرة الصغيرة.
العلاقات الداخلية
من جهة ثانية، تُعرف الميكوسوشيناي تصنيفياً على أنها فرع حيوي يتكون من أحدث سلف مشترك لكامبارا إيمبليكسيدينس، ميكوسوكس إينسبكتاتوس، وجميع نسلهما. بعيداً عن هذا التعريف، الذي يستلزم إدراج كامبارا وأسترالوسوشس عادةً فروعاً قاعدية للفصيلة، وينضم إليها أحياناً الجنس الأصغر سناً بكثير كالسيفرونس. استعاد ريستيفسكي وزملاؤه كالسيفرونس كأول ميكوسوشيناي ينفصل عن الفرع، يليه كامبارا وأسترالوسوشس، في سنة 2023. يتناقض هذا مع منشور عام 2023 من قبل ييتس وريستيفسكي وسالزبوري، الذين وجدوا أن كامبارا وأسترالوسوشس يشكلان فرعاً صغيراً خاصاً بهما في قاعدة المجموعة مع تباعد كالسيفرونس في وقت لاحق قليلاً. في غضون ذلك، استعاد منشور للي وييتس في عام 2018 أسترالوسوشس باعتباره الميكوسوشيناي الأكثر قاعدية، يليه كامبارا ووجد كالسيفرونس في وضع أكثر اشتقاقاً بين أعضاء الميكوسوشيناي.
يمكن رؤية السلالات المذكورة أعلاه هنا:
في هذا الإطار، عادة ما تظهر السلالات الحديثة أعضاء أكثر اشتقاقاً من الفصيلة تنقسم بين فرعين يتباعدان عن بعضهما البعض بعد أصناف مثل كامبارا وأسترالوسوشس. يرى ريستيفسكي وآخرون (2023) الفصيلة تنقسم إلى فرعين: أحدهما يحتوي على الأشكال كبيرة الجسم بارو، بالوديريكس وكوينكانا؛ وفرع للأصناف الجزرية والقزمة، والذي يتميز بوجود ألتراستينيوس، ترايلوفوسوشس، فوليا وميكوسوكس. كما استعاد لي وييتس هذا الانقسام في عام 2018، على الرغم من أن تكوين الفروع يختلف قليلاً. في دراستهم، لا يزال بارو يتقارب مع بالوديريكس (هنا لا يزال يُشار إليه بـ باليمناركوس)، ولكن بدلاً من كوينكانا يتضمن الفرع كالسيفرونس. الفرع الآخر مشابه كذلك لما استعادته الدراسات اللاحقة، حيث يضم ألتراستينيوس، فوليا، ميكوسوكس، ترايلوفوسوشس وكوينكانا. لم يستعد ييتس وريستيفسكي وسالزبوري هذا التفرع المميز للفروع في دراستهم لعام 2023، ومع ذلك، لم تتضمن دراستهم كذلك الكثير من الأصناف الموجودة في الدراسات الأخرى.
لي وييتس، 2018
أشكال غير مسماة
وفي السياق ذاته، تماماً مثل "تكوين بانوكبورن أصنوفة"، فإن "أصنوفة رونكورن" (سُميت باسم ضاحية من بريزبان) مجزأة للغاية بحيث لا يمكن تعيينها بشكل قاطع إلى ميكوسوشيناي، ولكن غالباً ما يُتكهن بأنها كانت جزءاً من المجموعة، حيث اقترح باول ويليس حتى أنها ربما كانت نوعاً من كامبارا.
وفي هذا الصدد، تُعرف أنواع غير مسماة كذلك لجنس كوينكانا، ولا سيما في شكل أونغيفا كوينكانا من ألكوتا. في غضون ذلك، قد تمثل "أصنوفة فلورافيل" جنساً منفصلاً من ميكوسوشيناي زيفودونت بدلاً من كونها نوعاً آخر من كوينكانا. كما تم استرداد أسنان تماسيح زيفودونت من حديقة كهوف جبل إتنا الوطنية في أستراليا.
كذلك، فضلًا عن الكثير من الأجناس والأنواع المسماة، يتعرف العلماء كذلك على عدد كبير من الأصناف المتميزة التي لم يتم وصفها علمياً أو تسميتها بعد. من بين هؤلاء ما يسمى بـ "أصنوفة دارلينج داونز"، والتي تتمثل في شظايا عظمية متعددة تحمل بعض الشبه بأنواع جنس بالوديريكس بينما تظل متميزة بشكل واضح عن كلا النوعين المسميين. بينما هي مجزأة للغاية بحيث لا يمكن تعيينها بشكل قاطع للجنس أو إقامتها كنوع جديد، فقد تم اعتبار المادة مؤقتاً كنوع ثالث من بالوديريكس، مع احتمال أن تكون جنساً مختلفاً تماماً. مثال آخر هو "أصنوفة بولوك كريك"، ميكوسوشيناي صغيرة معروفة منذ فترة طويلة بمشاركتها سمات مع ألتراستينيوس والتي من المحتمل أنها تنتمي إلى الجنس، لكنها لم تُسمَ بعد.
وعلى صعيد آخر، هناك ميكوسوشيناي مفترض آخر ذو أهمية جغرافية وهو "أصنوفة تكوين بانوكبورن"، وهو تمساح عاش في نيوزيلندا خلال أوائل الميوسيني. في حين أن المادة مجزأة للغاية بحيث لا يمكن اختبار تقاربها مع الميكوسوشيناي، فإن العمل الميداني بالقرب من سانت باثانز قد استرد المزيد من المواد التي يمكن أن تساعد في حل المسألة. فضلًا عن ذلك، يبدو أن هذه الاكتشافات تشير كذلك إلى أن تمساحين مختلفين على الأقل سكنا نيوزيلندا خلال هذه الفترة الزمنية.
وفي السياق ذاته، عُرفت بقايا تماسيح زيفودونت من تكوين أوتيباندا البليوسيني في بابوا غينيا الجديدة منذ عام 1967، ولكن أُشير إليها في البداية بسيبيدوسوشيا قبل اكتشاف ميكوسوشيناي زيفودونت. نظراً لعدم تصويرها أو وصفها بالتفصيل، ظلت علاقات هذه الأسنان غامضة إلى حد كبير في الخمسين عاماً التالية. تغير هذا في أواخر عام 2024، عندما وُصفت الأسنان بمزيد من التفصيل من قبل ريستيفسكي ومولنار وييتس. تُحدد الدراسة البقايا على أنها من فصيلة ميكوسوشينات غير محددة الجنس والنوع، مُستندةً إلى أن الموقع الجغرافي والعمر سيكونان غير عاديين للغاية بالنسبة لأي من تماسيح زيفودونت الأخرى في حقبة الحياة الحديثة، ومع ذلك، من غير الممكن تمييزها شكليًا عن السيبكوسوشيات أو البلانوكرانيات. وبالمثل، لا يمكن تمييزه عن أنواع جنس كوينكانا حتى يتم التوصل إلى فهم أفضل للاختلاف بين أسنان التماسيح ذات الأسنان الحلزونية.
الوصف
التنويع والتحول الحيواني
كذلك، في البداية، اعتُبر الانتقال من الميوسيني إلى البليوسيني بمثابة انخفاض في التنوع بين الميكوسوشيناي حيث شهد اختفاء كل من بارو المفترس الكبير والأشكال القزمة مثل ألتراستينيوس، ترايلوفوسوشس وميكوسوكس. قد تكون أسباب موجة الانقراض هذه مرتبطة بتغيرات واسعة النطاق في المناخ، مع انتهاء كل من التبريد العالمي والظروف المناخية المثلى للميوسيني الأوسط. قد يكون هذا قد أدى إلى فترة قاسية ولكن وجيزة من القحولة التي شهدت تراجع الغابات المطيرة الأسترالية وتدمير المناطق الأحيائية التي تفضلها مجموعات الميكوسوشيناي في الميوسيني. يمثل ميكوسوكس تحديداً نوعاً من الاستثناء، حيث انقرض فقط في البر الرئيسي واستمر في البقاء حتى الهولوسيني في جزر المحيط الهادئ المختلفة. لاحقاً، يشير ريستيفسكي وزملاؤه إلى أن الاكتشافات المستقبلية قد تُظهر أن هذه الحيوانات كان يمكن أن تنجو لفترة أطول قليلاً في البر الرئيسي كذلك.
وفي هذا السياق، بينما شهد الانتقال بين الميوسيني والبليوسيني اختفاء الكثير من مجموعات الميكوسوشيناي الراسخة، إلا أنه لم يتسبب في انقراض الفصيلة. نجت كوينكانا من الفترة الأولية من القحولة كما فعلت ميكوسوشيناي أخرى، والتي بدورها أدت إلى ظهور أشكال مثل كالسيفرونس وبالوديريكس. على الرغم من حقيقة أن الميكوسوشيناي تعافت، انضمت إليها مجموعات أخرى من التماسيح التي شقت طريقها إلى أستراليا، مثل الأنواع غير المسماة حتى الآن من صحراء تيراري لجنس تمساح. في حين تم طرح فرضية أولية بأن ظهور التمساح في أستراليا كان جزءاً من سبب انقراض الميكوسوشيناي، لا يوجد دليل فعلي يشير إلى وجود صلة مباشرة بين الحدثين، حيث من المحتمل أن تكون أصنوفة صحراء تيراري غير مرتبطة تماماً بالتماسيح التي تسكن أستراليا اليوم.
وفي هذا السياق، بينما كان نطاق وتنوع الميكوسوشيناي لا يزال محدوداً نسبياً خلال الفترة الفجرية، بحلول أواخر الأوليغوسيني تنوعت المجموعة بسرعة إلى وفرة من الأنماط المورفولوجية المختلفة التي تراوحت من كائنات عامة شبه مائية إلى متخصصين في افتراس الفرائس الكبيرة، وأشكال قزمة ومفترسات برية محتملة. أصل هذا التنويع غير واضح بسبب غياب أحافير الميكوسوشيناي في الفجوة البالغة 30 مليون عام بين أشكال أواخر الأوليغوسيني وكامبارا الأقدم. ومع ذلك، يُعتقد أن سلف هذا الإشعاع ظهر في موعد لا يتجاوز الفترة الفجرية الوسطى. على الرغم من تنوعها التصنيفي الهائل، كان نطاق الميكوسوشيناي خلال هذه الفترة الزمنية لا يزال محدوداً إلى حد ما، مع سجلات الميوسيني التي تنبع بشكل أساسي من مواقع في كوينزلاند والإقليم الشمالي.
الأنواع
كذلك، على الرغم من إدراجها أحياناً ضمن الميكوسوشيناي، تُعتبر أصنوفة الميوسيني هارباكوشامبسا نوعاً من الجافياليات في الأبحاث الحديثة.
اكتشافات مبكرة
ومن جهة أخرى، على الرغم من أن فصيلة الميكوسوشيناي لم تُنشأ إلا في التسعينيات، إلا أن المواد الأحفورية التي تنتمي إلى أعضاء هذا الفرع كانت معروفة من القارة الأسترالية منذ فترة طويلة. وُصفت المادة الأولى التي يُعترف الآن بأنها تنتمي إلى هذه المجموعة من التماسيح في سنة 1886 من قبل عالم الحيوان الإنجليزي تشارلز والتر دي فيس. تضمنت الأحافير، التي اكتُشفت في دارلينج داونز في كوينزلاند، شظايا جمجمة وهيكل عظمي ما بعد قحفي أطلق عليها دي فيس اسم باليمناركوس بولينز. صاغ دي فيس الاسم نفسه "للملاءمة" فقط، معترفاً بأنه لم يكن على دراية كافية بالسجل الأحفوري لتماسيح حقبة الحياة الحديثة ليكون متأكداً من أن اكتشافه يمثل حيواناً متميزاً عن أي أجناس أخرى كانت معروفة في ذلك الوقت. أظهرت الأبحاث اللاحقة أن المادة لم تنتمِ فقط إلى أفراد متعددين بل إلى أجناس مختلفة متعددة، حيث أُشير منذ ذلك الحين إلى عظام مختلفة لكل من بالوديريكس وكوينكانا على التوالي. وبغض النظر عن حذر دي فيس تجاه الأصنوفة، أصبح اسم باليمناركوس يُستعمل على نطاق واسع من قبل مؤلفين آخرين.
البيئة القديمة
من جهة ثانية، على الرغم من استخدام وجود الغدد الملحية لتفسير كل من انتشار الميكوسوشيناي في أستراليا وظهورها اللاحق في جزر المحيط الهادئ، إلا أن أجناس هذه الفصيلة ترتبط عموماً ببيئات المياه العذبة. يظهر هذا بالفعل في الأعضاء الأوائل، حيث تم استرداد كل من كامبارا مورجونينسيس وكامبارا إيمبليكسيدينس من البحيرات في حيوانات تينغامارا المحلية. وبالنظر إلى صغر حجم الأسماك المحلية نسبياً، التي لا يتجاوز أي منها متراً في الطول، يُعتقد أن الرواسب تمثل بحيرة ضحلة، ربما بيلابونج. على الرغم من الاعتقاد بأن كامبارا كان يعتمد على المياه العذبة، إلا أن الأدلة تُظهر أن البيئة كانت خاضعة لظروف جافة، مما أدى في إحدى الحالات إلى حدث نفوق جماعي. سكن النوع الأصغر سناً كامبارا تارينا وكامبارا مولناري، على الرغم من أنهما ليسا متزامنين مثل أقاربهما، تكوين راندل، الذي تم تفسيره على أنه يمثل بحيرة شاطئة أو سهل طيني. على الرغم من استخدام التشابه كمؤشر على حقيقة أن كامبارا كان مقيداً بالمياه العذبة، إلا أن الجنس ربما كان مع ذلك أكثر انتشاراً، حيث تكهن هولت وزملاؤه بأن الحيوان ربما كان شائعاً عبر الممرات المائية الداخلية لكوينزلاند.
الحجم
وعلى صعيد آخر، تأتي الميكوسوشيناي في مجموعة واسعة من الأحجام، حيث يبلغ طول أصغر جنس معروف ترايلوفوسوشس قرابة . ترايلوفوسوشس هو واحد من عدة أصناف صغيرة الجسم موضوعة في فرع حيوي من الميكوسوشيناي القزمة والجزرية، مع أصناف قزمة بارزة أخرى تشمل ميكوسوكس وايت هانتيرنسيس، الذي يُقدر وصوله إلى أطوال قرابة ، ألتراستينيوس، الذي ربما وصل طوله إلى نحو ، وميكوسوكس إينسبكتاتوس، الذي قُدر نموه ليصل إلى أطوال قرابة من قبل هولت وما يصل إلى من قبل بالوت.
علاوةً على ذلك، أكبر الميكوسوشيناي المفهومة جيداً تنتمي إلى جنسي بارو وبالوديريكس، حيث تصل أطوالها إلى و على التوالي.
علاوةً على ذلك، قُدرت أنواع كوينكانا بين لكوينكانا ميبولدي و لكوينكانا فورتيروسترم، مما يدفعها إلى نطاق الأعضاء متوسطة الحجم في الفصيلة. توجد بعض التقارير الأكبر، لكنها تتعلق ببقايا سيئة الفهم ومجزأة. تشمل الميكوسوشيناي الأخرى في هذا النطاق كالسيفرونس، أسترالوسوشس وكامبارا، حيث يصل الأخير إلى ما بين اعتماداً على النوع.
علم الوراثة العرقي
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟