بروتين مضاد للتجمد
المحتويات
- تغيير الاسم
- التطبيقات التجارية والطبية
- تحمّل التجمد في مقابل تجنّب التجمد
- آلية الارتباط ووظيفة منع التجمد
- البروتينات النباتية المضادة للتجمد
- إطالة مدة صلاحية الأغذية المجمدة
- الخصائص غير التجميعية
- التباطؤ الحراري
- البروتينات السمكية المضادة للتجمد
- أحدث الأخبار
- البروتينات الحشرية المضادة للتجمد
- بروتينات كائنات الجليد البحري
- التاريخ
- التنوّع
- الارتباط بالجليد
- آلية العمل
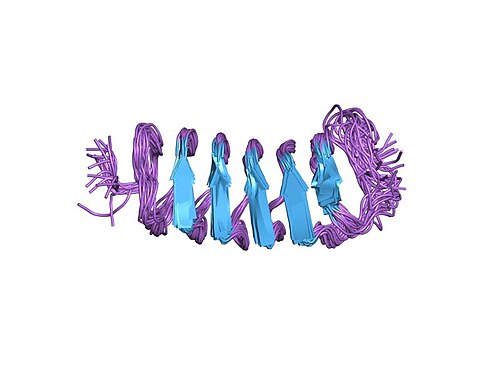
على سبيل التعريف، البروتينات المضادة للتجمد (بالإنجليزية: Antifreeze proteins، اختصاراً AFPs)، وتُعرف كذلك باسم بروتينات هيكلة الجليد (ice-structuring proteins)، هي زمرة من عديدات الببتيد تُنتجها بعض الحيوانات والنباتات والفطريات والبكتيريا، وتمكّنها من البقاء حيّة في درجات حرارة تقل عن نقطة تجمد الماء. تعمل هذه البروتينات عبر الارتباط ببلورات الجليد الدقيقة الناشئة، فتحول دون نموها وإعادة تبلورها، وهي عملية قد تكون قاتلة لو تُركت دون كبح. وتتزايد الأدلة على أن هذه البروتينات تتفاعل كذلك مع أغشية الخلايا في الثدييات فتقيها من أضرار البرد، ما يوحي بضلوعها في عمليات تأقلم الكائنات مع البرودة. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
تغيير الاسم
وفي هذا الصدد، جرت محاولات لإعادة تسمية البروتينات المضادة للتجمد بـ"بروتينات هيكلة الجليد" (ice structuring proteins)، بهدف التعبير عن وظيفتها بدقة أكبر والتخلص من أي ارتباط ذهني سلبي مفترَض بينها وبين سوائل تبريد السيارات المحتوية على إيثيلين غليكول. فهاتان المادتان كيانان منفصلان تماماً، ولا يتشاركان سوى تشابه سطحي في الوظيفة العامة (خفض نقطة التجمد).
التطبيقات التجارية والطبية
تحسين إنتاج المزارع السمكية في المناخات الباردة
وفي السياق ذاته، زيادة تحمّل المحاصيل الزراعية للتجمد وإطالة موسم الحصاد في المناخات الباردة
ومن ناحية أخرى، يمكن لمجالات عديدة الاستفادة من قدرة هذه البروتينات على حماية الأنسجة من تلف التجمد، وتدرس الشركات في الوقت الحالي استخدامها في:
تحمّل التجمد في مقابل تجنّب التجمد
كذلك، يمكن تصنيف الكائنات التي تحمل بروتينات مضادة للتجمد إلى فئتين رئيسيتين:
ومن ناحية أخرى، الكائنات المتجنبة للتجمد: وهي قادرة على منع سوائلها الجسمية من التجمد كلياً. وبصورة عامة، يمكن التغلب على فعالية هذا البروتين عند درجات حرارة شديدة الانخفاض، ما يفضي إلى نمو سريع للجليد داخل الجسم وموت الكائن.
إضافةً إلى ذلك، الكائنات المتحملة للتجمد: وهي قادرة على البقاء حيّة رغم تجمّد سوائلها الجسمية فعلياً. ويُرجَّح أن بعض هذه الكائنات تستعمل البروتينات المضادة للتجمد كمواد واقية من التجمد (cryoprotectants)، لا لمنع التجمد بذاته، بل للحيلولة دون الضرر الناجم عنه؛ إذ لا تزال الآلية الدقيقة لذلك غير معروفة تماماً. ويُعتقد أن هذه البروتينات تُثبّط إعادة تبلور الجليد وتُثبّت أغشية الخلايا، فتقيها من التلف الجليدي. وقد تعمل جنباً إلى جنب مع بروتينات تنوّي الجليد (INPs) للتحكم في معدل انتشار الجليد داخل الجسم بعد حدوث التجمد.
آلية الارتباط ووظيفة منع التجمد
من جانب آخر، بحسب دراسة البنية والوظيفة التي أُجريت على البروتين المضاد للتجمد المستخلص من سمك فلوند الشتوي (Pseudopleuronectes americanus)، تبيّن أن آلية عمل جزيء البروتين المضاد للتجمد من النوع الأول تقوم على الارتباط ببنية تنوّي الجليد بطريقة "شبيهة بالسحّاب" (zipper-like)، عبر تكوّن روابط هيدروجينية بين مجموعات الهيدروكسيل الموجودة في بقاياه الأربع من الثريونين وذرات الأكسجين الممتدة على طول الاتجاه داخل شبكة الجليد البلورية، مما يوقف أو يُبطئ نمو الأوجه الهرمية للجليد، فتنخفض بذلك درجة حرارة التجمد.
في هذا الإطار، تكرار بقية الثريونين (أو أي بقية حمض أميني قطبي آخر قادرة سلسلته الجانبية على تكوين رابطة هيدروجينية مع الماء) بمعدل دوري كل 11 حمضًا أمينيًا على طول التسلسل المعني.
إضافةً إلى ذلك، ويمكن الاستعانة بهذه الآلية نفسها لتفسير العلاقة بين البنية والوظيفة في بروتينات مضادة أخرى للتجمد، وذلك من خلال سمتين مشتركتين:
نسبة مرتفعة من بقايا الألانين ضمن التسلسل ذاته.
البروتينات النباتية المضادة للتجمد
علاوةً على ذلك، وظيفتها الفيزيولوجية الأساسية تكمن، على الأرجح، في تثبيط إعادة تبلور الجليد لا في منع تكوّنه ابتداءً.
وفي هذا الصدد، نشاط تباطؤها الحراري أضعف بكثير مقارنة بغيرها من البروتينات المضادة للتجمد.
من جهة ثانية، أغلبها بروتينات مرتبطة تطورياً بما يُعرف بـ"البروتينات المرتبطة بالإمراض" (pathogenesis-related proteins)، وتحتفظ بعضها بخصائص مضادة للفطريات.
ومن ناحية أخرى، ازداد تصنيف البروتينات المضادة للتجمد تعقيداً بعد اكتشاف نظائر نباتية لها. وتختلف هذه البروتينات عن نظيراتها الحيوانية والميكروبية في ثلاثة جوانب رئيسية:
إطالة مدة صلاحية الأغذية المجمدة
في هذا الإطار، وتُدرَج هذه البروتينات على ملصقات المنتجات تحت مسمى "ISP" أو "بروتين هيكلة الجليد"، بدلاً من "AFP" أو "بروتين مضاد للتجمد".
كذلك، وقد حصلت شركة يونيليفر على موافقات في المملكة المتحدة والولايات المتحدة والاتحاد الأوروبي والمكسيك والصين والفلبين وأستراليا ونيوزيلندا لاستخدام خميرة معدّلة وراثياً لإنتاج بروتينات مضادة للتجمد مستمَدة من الأسماك، لاستخدامها في صناعة الآيسكريم.
- تحسين جراحة التبريد (cryosurgery)
- تعزيز حفظ الأنسجة لأغراض الزرع أو نقل الدم في الطب
- العلاج من انخفاض حرارة الجسم (hypothermia)
- حفظ الجسم البشري بالتبريد (Cryonics)
الخصائص غير التجميعية
وعلى صعيد آخر، خلافاً لمضادات التجمد الشائعة الاستخدام في السيارات، مثل إيثيلين غليكول، لا تُخفّض البروتينات المضادة للتجمد درجة التجمد بما يتناسب طرداً مع تركيزها. فهي، بدلاً من ذلك، تعمل بآلية غير تجميعية، ما يتيح لها ممارسة تأثيرها المانع للتجمد بتراكيز لا تتجاوز 1/300 إلى 1/500 من تراكيز المذابات التقليدية اللازمة للغرض ذاته. ويقلّل هذا التركيز المنخفض جداً من تأثيرها على الضغط الاسموزي للسوائل الحيوية. وتُعزى هذه الخاصية غير المألوفة إلى الألفة الانتقائية لهذه البروتينات تجاه أوجه بلورية محددة من الجليد، وما ينتج عن ذلك من حصر فيزيائي لعملية تنوّي الجليد ونموّه.
التباطؤ الحراري
كذلك، كما يمكن لمعدل التبريد أن يؤثر في قيمة التباطؤ الحراري؛ فالتبريد السريع قد يخفّض نقطة التجمد غير المتوازنة تخفيضاً حاداً، ما يقلّص من قيمة التباطؤ الحراري الفعلية. ونتيجة لذلك، لا تستطيع بعض الكائنات التأقلم مع بيئتها تحت الصفرية إذا حدث الانخفاض في درجة الحرارة بصورة مفاجئة.
ومن ناحية أخرى، يُقاس التباطؤ الحراري مخبرياً بسهولة باستخدام المقياس الأسموزي النانولتري، وتتفاوت الكائنات الحية تفاوتاً كبيراً في قيم هذا التباطؤ. فأعلى قيمة تباطؤ حراري مسجلة لبروتين مضاد للتجمد سمكي شديد الفعالية تبلغ نحو −3 درجات مئوية (26.6 درجة فهرنهايت)، في حين لا تتجاوز هذه القيمة درجة مئوية واحدة على وجه التقريب في بروتينات AFP السمكية المعتدلة الفعالية الأكثر شيوعاً. ولا تتعرض أغلب الكائنات المائية إلا لدرجات حرارة تتراوح بين −1 و−2 درجة مئوية تحت الصفر. أما دودة براعم التنوب فتقاوم التجمد خلال أشهر الشتاء القارس عند درجات حرارة تقترب من −30 درجة مئوية. بل إن البروتينات المضادة للتجمد الحشرية أنشط بمقدار يتراوح بين 10 و30 مرة من أي بروتين مضاد للتجمد سمكي معروف. وبحسب ذلك، تستطيع خنفساء ألاسكا (Upis ceramboides) الصمود عند درجات حرارة تصل إلى −60 درجة مئوية، وذلك بالاعتماد على جزيء الزيلومانان (xylomannan) غير البروتيني المضاد للتجمد.
علاوةً على ذلك، تُحدث البروتينات المضادة للتجمد فارقاً بين درجة الانصهار ودرجة التجمد الفعلية (أي الدرجة التي تنهار عندها بلورة الجليد المرتبطة بالبروتين)، وهو ما يُعرف بظاهرة التباطؤ الحراري. فحين تتوضع هذه البروتينات عند السطح الفاصل بين الجليد الصلب والماء السائل، فإنها تُثبّط النمو الذي يُفترض أن يحدث ديناميكياً حرارياً لبلورة الجليد؛ إذ يُكبح نمو الجليد حركياً بفعل تغطية هذه البروتينات للأسطح الجليدية القابلة للنمو.
البروتينات السمكية المضادة للتجمد
إضافةً إلى ذلك، وتتكوّن البروتينات المضادة للتجمد في الأسماك، على وجه العموم، بصورة غالبة من بقايا الألانين (L-alanine)، تتخللها بقايا الثريونين (L-threonine) على فترات منتظمة ضمن التسلسل.
إضافةً إلى ذلك، البروتينات من النوع الرابع توجد في القلس طويل القرون، وهي بروتينات حلزونية ألفا غنية ببقايا الغلوتامات والغلوتامين. تبلغ كتلته نحو 12 كيلو دالتون، ويتشكّل من حزمة من أربعة حلزونات، والتعديل الوحيد اللاحق للترجمة فيه هو تحوّل بقية غلوتامين طرفية إلى بقية بيروغلُوتامين حلقية عند النهاية الأمينية.
من جهة ثانية، البروتينات من النوع الثاني (مثل ) توجد في سمك راكون البحر، وفي السميلت، وفي الرنجة. وهي بروتينات كروية غنية بالسيستئين، تحتوي على خمس روابط ثنائية سلفيد. ويُرجَّح أنها تطورت من لكتينات معتمِدة على الكالسيوم من النوع C. وتُعد أسماك راكون البحر والسميلت والرنجة سلالات شديدة التباعد ضمن رتب الأسماك الشعاعية الزعانف؛ ولو كان جين هذا البروتين موجوداً في السلف المشترك الأخير لهذه السلالات، لَبَدا توزّعه المتقطّع عبرها أمراً لافتاً، إذ يظهر في بعض الرتب ويغيب عن أخرى. ولتفسير هذا التناقض، اقتُرح حدوث انتقال أفقي للجين، بحيث اكتسبت أسماك السميلت جين هذا البروتين من الرنجة.
وعلى صعيد آخر، البروتين المضاد للتجمد من النوع الأول موجود في سمك الفلاوندر الشتوي، وفي القلس طويل القرون، وفي القلس قصير القرون. وهو أفضل هذه البروتينات توثيقاً، إذ كان أول بروتين مضاد للتجمد تُحدَّد بنيته ثلاثية الأبعاد. ويتألف من حلزون ألفا واحد طويل مبرمَج للتفاعل مع الماء (amphipathic)، تتراوح كتلته بين 3.3 و4.5 كيلو دالتون على وجه التقريب، وله ثلاثة أوجه بنيوية: وجه كاره للماء، ووجه محب للماء، ووجه غني ببقايا الثريونين والأسباراجين (Thr-Asx).
من جانب آخر، توجد السكريات البروتينية المضادة للتجمد (AFGPs) في أسماك نوتوثينويد القطب الجنوبي وفي أسماك القدّ الشمالية، وتتراوح كتلتها الجزيئية بين 2.6 و3.3 كيلو دالتون. وقد تطوّر جين AFGP بصورة مستقلة في كل من مجموعتي الأسماك هاتين؛ ففي نوتوثينويد القطب الجنوبي، نشأ هذا الجين من جين سلفي لـبروتياز السيرين الشبيه بالتربسين.
وفي هذا السياق، البروتينات من النوع الثالث توجد في إيلپوت القطب الجنوبي (Antarctic eelpout)، وتُظهر نمط كره ماء عاماً مشابهاً لأسطح الارتباط بالجليد في بروتينات النوع الأول، بكتلة تقارب 6 كيلو دالتون. ويُرجَّح أنها تطورت من جين إنزيم تخليق حمض السياليك (SAS) الموجود أصلاً في هذا السمك؛ إذ أدّى حدث تضاعف جيني إلى ظهور نسخة من هذا الجين - كان يمتلك أصلاً بعض النشاط الرابط للجليد - تطورت إلى جين فعّال بعد فقدانها الجزء الطرفي الأميني (N-terminus).
من جهة ثانية، وتوجد كذلك صيغة "شديدة الفعالية" من هذا النوع تُعرف بـ Type I-hyp، بكتلة تبلغ نحو 32 كيلو دالتون (على هيئة ثنائي جزيئي بقوة 17 كيلو دالتون لكل وحدة)، عُزلت من بلازما الدم لسمك الفلاوندر الشتوي، وتتفوّق بشكل ملحوظ على أغلب البروتينات المضادة للتجمد السمكية في خفض درجة حرارة التجمد. ويُعزى جزء من هذه الفعالية المضاعفة إلى تكرار مواقع الارتباط بالجليد من النوع الأول داخل جزيء البروتين الواحد.
أحدث الأخبار
روابط خارجية
من جهة ثانية، وفي نوفمبر 2009، نشرت مجلة Proceedings of the National Academy of Sciences اكتشاف جزيء في خنفساء ألاسكا يسلك سلوكاً شبيهاً بالبروتينات المضادة للتجمد، إلا أنه يتكون من سكريات وأحماض دهنية بدلاً من الأحماض الأمينية.
وفي السياق ذاته، من أنجح المساعي التجارية الحديثة إدخالُ هذه البروتينات في منتجات الآيسكريم والزبادي؛ وقد حصل هذا المكوّن، المُصنَّف تحت اسم "بروتين هيكلة الجليد"، على موافقة إدارة الغذاء والدواء الأمريكية. وتُعزَل هذه البروتينات أصلاً من الأسماك، ثم تُستنسَخ على نطاق أوسع باستخدام خميرة معدّلة وراثياً.
إضافةً إلى ذلك، وتُدرِج شركة يونيليفر في الوقت الحالي هذه البروتينات في بعض منتجاتها الأمريكية، بما فيها بعض مصاصات الثلج من علامة بوبسيكل، وخط جديد من ألواح آيسكريم بريرز "لايت دبل تشيرند". وفي الآيسكريم، تسمح هذه البروتينات بإنتاج آيسكريم كريمي وكثيف ومنخفض الدهون بإضافات أقل. كما تتحكم في نمو بلورات الجليد الناتج عن الذوبان الجزئي أثناء النقل أو على منضدة المطبخ، وهو ما يحدّ من تدهور جودة القوام.
في هذا الإطار، كما يُستخدَم على نطاق واسع في المجتمع الأسلوب المُعدَّل وراثياً (transgenic) نفسه في إنتاج بروتينات هيكلة الجليد؛ وهو الأسلوب المستخدَم كذلك في إنتاج الإنسولين والإنفحة (rennet). ولا يؤثر هذا الأسلوب في خصائص المنتج النهائي؛ بل يجعل عملية الإنتاج أكثر كفاءة، ويحول دون قتل الأسماك التي كانت ستُذبح لاستخلاص البروتين منها مباشرة.
في هذا الإطار، وتُبدي بعض المنظمات المعارِضة للكائنات المعدلة وراثياً (GMOs) قلقاً من احتمال تسبّب هذه البروتينات بالتهابات. ومع ذلك، فإن استهلاك هذه البروتينات عبر الغذاء أمر شائع أصلاً وبكميات معتبرة في أغلب المناطق الشمالية والمعتدلة. ونظراً للاستهلاك التاريخي المعروف لهذه البروتينات، يمكن القول بأمان إن خصائصها الوظيفية لا تُحدث أي تأثيرات سمّية أو تحسسية لدى الإنسان.
إضافةً إلى ذلك، وأظهرت دراسة عام 2010 استقرار بلورات الجليد المائي المُسخَّن فوق نقطة انصهاره الطبيعية في محلول يحتوي على بروتين مضاد للتجمد، مما يدل على أن هذه البروتينات، كما تُثبّط التجمد، يمكنها كذلك تثبيط الذوبان. وفي عام 2021، توصّل علماء من المعهد الفدرالي السويسري للتكنولوجيا في لوزان (EPFL) وجامعة وارويك إلى تقليد اصطناعي لهذه البروتينات المضادة للتجمد.
المراجع
البروتينات الحشرية المضادة للتجمد
علاوةً على ذلك، أما قفّازات الثلج (Collembola)، فليست حشرات بالمعنى الدقيق، لكنها - شأنها شأن الحشرات - من مفصليات الأرجل سداسية الأرجل. وينتج أحد أنواعها الكندية، المعروف شعبياً بـ"برغوث الثلج"، بروتينات مضادة للتجمد شديدة الفعالية، ورغم تكرارية بنيتها واحتوائها على سطح مسطح للارتباط بالجليد، فإن التشابه مع البروتينات الحشرية الأخرى يتوقف عند هذا الحد؛ إذ يتكون هذا البروتين من قرابة 50% غليسين، مرتَّبة في تكرارات من نمط Gly-Gly-X أو Gly-X-X (حيث X أي حمض أميني)، وتشكّل كل وحدة ثلاثية دورة واحدة من حلزون من نوع بوليبرولين II، تلتف حلزوناته معاً لتكوين حزمة سميكة ثنائية الحلزون، يهيمن على سطحها الرابط للجليد بقايا كارهة للماء صغيرة كالألانين بدلاً من الثريونين. وتنتج حشرات أخرى، مثل خنفساء ألاسكا، مواد مضادة للتجمد شديدة الفعالية إنما أقل تشابهاً مع سابقاتها، كونها بوليمرات سكرية (كسیلومانان) لا بروتينية. ويشير هذا التنوع مجتمِعاً إلى أن أغلب هذه البروتينات ومضادات التجمد غير البروتينية نشأت بعد تباعد السلالات المؤدية إلى هذه الحشرات المختلفة، وأن أوجه التشابه بينها ناتجة عن تطوّر متقارب لا عن أصل مشترك.
من جانب آخر، تحمل عدة حشرات بروتينات مضادة للتجمد، منها خنافس ديدرُويدِس وتينيبريو وراغيوم، وكذلك عثة دودة براعم التنوب وعثة البهلوان الشاحب والهاموش (البعوض الرافع). وتتشارك هذه البروتينات في سمات عامة، إذ يتميز أغلبها بفعالية أعلى (أي قيم تباطؤ حراري أكبر، وتُوصف بـ"شديدة الفعالية")، وببنية متكررة ذات سطح مسطح مخصص للارتباط بالجليد. ففي خنافس Tenebrio وDendroides الوثيقتَي القرابة، تتماثل البروتينات بنيوياً، وتحوي كل وحدة تكرار من 12 إلى 13 حمضاً أمينياً مثبَّتة بجسر ثنائي سلفيد داخلي، وتضم الأشكال الإسفينية بين 6 و10 وحدات من هذه التكرارات مُلتفّة على هيئة حلزون بيتا (لولب بيتا)، يحمل أحد جانبيه سطحاً مسطحاً للارتباط بالجليد مكوّناً من صفّ مزدوج من بقايا الثريونين. أما خنافس جنس Rhagium، فتحمل وحدات تكرار أطول تفتقر إلى جسور ثنائي السلفيد الداخلية، وتشكّل حلزون بيتا مضغوطاً (شطيرة بيتا) بأربعة صفوف من بقايا الثريونين، وهو تصميم شبيه ببنية البروتين المضاد للتجمد غير المتجانس الموجود في عثة البهلوان الشاحب. في المقابل، فإن بروتين عثة دودة براعم التنوب حلزوني الشكل كذلك، ويشبه ظاهرياً بروتين Tenebrio وله سطح ارتباط مماثل بالجليد، غير أنه يتميز بمقطع عرضي مثلثي ووحدات تكرار أطول تفتقر إلى الجسور الداخلية. أما بروتين الهاموش فهو شبيه بنيوياً ببروتينَي Tenebrio وDendroides، إلا أن حلزون البيتا المدعوم بجسور ثنائي السلفيد فيه يتألف من وحدات تكرار أقصر (10 أحماض أمينية)، ويتكوّن سطح الارتباط بالجليد فيه من صف واحد من بقايا تيروسين بدلاً من الثريونين.
بروتينات كائنات الجليد البحري
علاوةً على ذلك، وقد أُميطت اللثام عن بنى عديدة لهذه العائلة من بروتينات الجليد البحري، التي تطوي سلاسلها على هيئة حلزون بيتا يشكّل سطحاً مسطحاً رابطاً للجليد. وخلافاً لبقية أصناف البروتينات المضادة للتجمد، لا يوجد نمط تسلسلي واحد مميز لموقع الارتباط بالجليد في هذه العائلة.
وفي هذا الصدد، تمتلك عدة كائنات دقيقة تعيش في الجليد البحري بروتينات مضادة للتجمد تنتمي إلى عائلة واحدة. وتؤدي الدياتومات Fragilariopsis cylindrus وF. curta دوراً محورياً في مجتمعات الجليد البحري القطبي، إذ تسيطر على تجمعات الطبقة السطحية وداخل الجليد المتلبد. وتنتشر جينات هذا البروتين على نطاق واسع في هذين النوعين، ويشي وجودها كعائلة متعددة النسخ الجينية بأهميتها لجنس Fragilariopsis. وتنتمي البروتينات المحددة في F. cylindrus إلى العائلة ذاتها الموجودة في كائنات أخرى مرتبطة بالجليد البحري، مثل Colwellia spp.، وNavicula glaciei، وChaetoceros neogracile، وStephos longipes، وLeucosporidium antarcticum، وكذلك في بكتيريا الجليد القطبي الجنوبي الداخلي (Flavobacteriaceae)، فضلاً عن فطريات متحملة للبرودة مثل Typhula ishikariensis وLentinula edodes وFlammulina populicola. وأظهرت دراسة بنيوية لاحقة على بروتين مضاد للتجمد مستخلَص من فطر عفن ثلجي أن موقع الارتباط بالجليد فيه يخرج عن النمط البنيوي المنتظم ودرجة الحفظ التطوري العالية اللذين يُميّزان عادةً هذه الفئة من البروتينات.
من جانب آخر، ويتمتع بروتين مستخلَص من الميتاجينوم الخاص بـالهدبي Euplotes focardii وبكتيريا محبة للبرودة بقدرة فعّالة على تثبيط إعادة تبلور الجليد. فتركيز واحد ميكرومولار من بروتين الارتباط بالجليد الخاص بهذا الكائن (EfcIBP) كافٍ لتثبيط إعادة تبلور الجليد تثبيطاً تاماً عند −7.4 درجة مئوية. وهذه القدرة على تثبيط إعادة التبلور - لا منع التجمد ابتداءً - هي التي تساعد هذه البكتيريا على تحمّل التجمد. كما يُحدث هذا البروتين قدراً من التباطؤ الحراري، وإن كانت فعاليته في ذلك أضعف من فعاليته في تثبيط إعادة التبلور. ويحمي EfcIBP كلاً من البروتينات النقية والخلايا البكتيرية الكاملة عند درجات حرارة التجميد؛ فمثلاً، يحتفظ بروتين فلوري أخضر بفعاليته بعد دورات متعددة من التجميد والإذابة إذا احتُضن مع هذا البروتين، كما تعيش بكتيريا إشريكية قولونية لفترة أطول عند صفر درجة مئوية إذا أُدخل جين efcIBP إلى جينومها. وتتألف بنية EfcIBP من مزيج نموذجي من صفائح بيتا وحلزونات ألفا، وتتوضع جميع بقاياه القطبية المرتبطة بالجليد في موقع واحد من جزيء البروتين.
التاريخ
إضافةً إلى ذلك، في خمسينيات القرن العشرين، سعى العالِم بير فريدريك شولاندر (Per Fredrik Scholander) وزملاؤه لتفسير كيف تستطيع أسماك القطب الشمالي البقاء حيّة في مياه أبرد من نقطة تجمد دمها، وقادتهم تجاربهم إلى الاعتقاد بوجود مادة "مضادة للتجمد" في دم هذه الأسماك.ثم في أواخر الستينيات، تمكّن عالِم الأحياء آرثر دي فرايز من عزل البروتين المضاد للتجمد فعلياً من خلال أبحاثه على أسماك القطب الجنوبي. وأُطلق على هذه البروتينات لاحقاً اسم "السكريات البروتينية المضادة للتجمد" (AFGPs) أو الببتيدات السكرية المضادة للتجمد، تمييزاً لها عن عوامل التجمد الحيوية غير السكرية المكتشفة حديثاً (AFPs). وتعاون دي فرايز مع روبرت فيني عام 1970 لوصف الخصائص الكيميائية والفيزيائية لهذه البروتينات. وفي عام 1992، وثّق غريفيث وزملاؤه اكتشافهم لبروتين مضاد للتجمد في أوراق الشيلم الشتوي (winter rye). وفي الفترة ذاتها على وجه التقريب، وثّق كل من أوروتيا ودومان وكنايت (1992) وجود بروتين التباطؤ الحراري في كاسيات البذور. وفي العام التالي، أشار دومان وأولسن إلى اكتشاف هذه البروتينات في أكثر من 23 نوعاً من كاسيات البذور، من بينها أنواع يتغذى عليها الإنسان، كما أفادا بوجودها في الفطريات والبكتيريا كذلك.
التنوّع
من جهة ثانية، تُعرف اليوم أنواع عديدة من البروتينات المضادة للتجمد غير المتجانسة بنيوياً وتطورياً، أي التي نشأت عبر تطوّر متقارب مستقل.
الارتباط بالجليد
كذلك، عادةً، لا تُظهر بلورات الجليد النامية في المحلول سوى الوجه القاعدي (0001) ووجه المنشور (1010)، فتبدو على هيئة أقراص مستديرة ومسطحة. إلا أن وجود البروتينات المضادة للتجمد يبدو أنه يكشف عن أوجه بلورية أخرى؛ إذ يظهر أن السطح 2021 هو سطح الارتباط المفضّل، على الأقل بالنسبة لبروتين النوع الأول. وقد افترضت الدراسات المبكرة على بروتين النوع الأول أن التفاعل بين الجليد والبروتين يحدث عبر الروابط الهيدروجينية (Raymond وDeVries، 1977)؛ غير أنه عند إحداث طفرات في أجزاء البروتين التي يُعتقد أنها تُسهّل هذا الترابط الهيدروجيني، لم يُلاحَظ الانخفاض المتوقع في الفعالية المضادة للتجمد. وتشير بيانات أحدث إلى أن التفاعلات الكارهة للماء قد تكون المساهم الرئيسي فعلياً. ولا يزال تحديد الآلية الدقيقة للارتباط أمراً صعباً بسبب تعقيد السطح الفاصل بين الماء والجليد؛ وتُبذل في الوقت الحالي محاولات لكشف هذه الآلية بدقة عبر برامج النمذجة الجزيئية (سواء الديناميكا الجزيئية أو طريقة مونت كارلو).
آلية العمل
ومن ناحية أخرى، يُعتقد أن البروتينات المضادة للتجمد تُثبّط نمو الجليد عبر آلية الامتزاز-التثبيط (adsorption-inhibition). فهي تمتزّ على الأوجه غير القاعدية (non-basal planes) لبلورة الجليد، مما يُثبّط النمو الذي يُفترض أن يحدث ديناميكياً حرارياً. ويبدو أن وجود سطح مسطّح وصلب في بعض هذه البروتينات يُسهّل تفاعلها مع الجليد عبر التكامل السطحي المرتبط بـقوة فان دير فالس. وقد تناولت دراسات لاحقة هذه الآلية بمزيد من التفصيل الكمّي، موضّحةً كيف تُفضي عملية الامتزاز تحديداً إلى نشوء فجوة التباطؤ الحراري المُلاحَظة تجريبياً.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟