باليوثيريوم
المحتويات
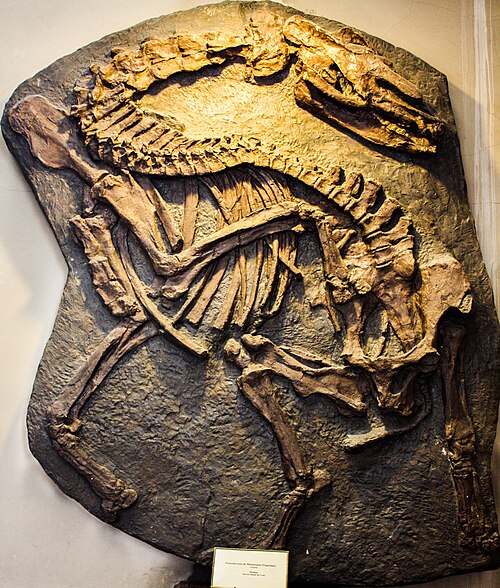
في البداية، باليوثيريوم (الاسم العلمي: ، ومعناه «الوحش القديم») جنس منقرض من الحافريات الفردية الأصابع الشبيهة بالخيليات ، عاش في أوروبا وربما الشرق الأوسط في المدة الممتدة من الإيوسين الأوسط إلى الأوليغوسين المبكر. وهو الجنس النمطي لفصيلة الباليوثيريات ، وهي مجموعة اقتصر وجودها على الباليوجين وكانت أوثق المجموعات صلةً بفصيلة الخيليات التي تضم الخيول وأقرب أقاربها وأسلافها. وُصفت مستحاثات باليوثيريوم لأول مرة سنة 1782 على يد عالم الطبيعة الفرنسي روبير دو لامانون، ثم درسها بعناية عالم طبيعة فرنسي آخر هو جورج كوفييه بعد سنة 1798. أنشأ كوفييه الجنس سنة 1804، وميّز فيه عدة أنواع اعتمادًا على أحجام المستحاثات وأشكالها الإجمالية. وبوصفه واحدًا من أوائل الأجناس الأحفورية التي عُرِّفت بسلطة تصنيفية رسمية، فإنه يُعد معلمًا مهمًا في تاريخ علم المتحجرات. وقد أسهمت الأبحاث التي أجراها علماء الطبيعة الأوائل على باليوثيريوم في تطور أفكار التطور والانقراض والتعاقب، وفي إظهار التنوع الشكلي بين أنواع مختلفة داخل جنس واحد. ونتناول فيما يلي مزيدًا من التفاصيل.
التصنيف
كذلك، تباينت أحجام أجسام الأنواع تباينًا كبيرًا؛ فبلغ أكبرها، وهو النوع ، نحو 1.3 متر عند الكتف و2.52 متر طولًا، فكان من ثمّ من أضخم الثدييات في إيوسين أوروبا. ولربما عاش باليوثيريوم في قطعان، وكان قادرًا — كما تدل أسنانه — على تقاسم المكانة البيئية بنشاط مع باليوثيري آخر هو عبر التخصص في الأوراق والثمار الأكثر ليونة، وإن كان كلاهما آكلًا للأوراق في الأغلب.
كذلك، وبحلول الأوليغوسين المبكر، انقرض أغلب أنواعه إلى جانب كثير من أجناس ثدييات أوروبا الغربية ضمن حدث انقراض وتبدّل الحيوانات المعروف باسم القطع الكبير (بالفرنسية: )، وتُعزى أسباب هذه الانقراضات أساسًا إلى التغيرات البيئية الناجمة عن ازدياد التجلد والفصلية، وإلى التفاعلات السلبية مع الحيوانات المهاجرة من آسيا (المنافسة و/أو الافتراس)، أو إلى مزيج من العاملين. وقد نجا النوع بعد القطع الكبير، على الأرجح بفضل طبيعته العدّاءة التي مكّنته من التنقل عبر الأراضي المفتوحة بكفاءة أكبر والإفلات من اللواحم المهاجرة؛ وكان آخر أنواع جنسه، وانقرض بعد حدث تبدّل الحيوانات بمدة غير طويلة.
من جانب آخر، يُرجَّح أن باليوثيريوم وأجناسًا أخرى من الفُصيلة الفرعية الباليوثيريينات قد انحدرت من فُصيلة فرعية أقدم هي ، التي عاشت في أوروبا وآسيا معًا لا في أمريكا الشمالية، على عكس أعضاء الخيليات غير المتنازع عليهم. وبحلول ظهور أول نوع، وهو ، في الإيوسين الأوسط، كانت أوروبا الغربية أرخبيلًا معزولًا عن بقية أوراسيا، مما يعني أنه والأنواع اللاحقة عاشت في بيئة ضمّت حيوانات أخرى متنوعة تطورت هي كذلك بمستويات عالية من التوطن. وكان لشبه الجزيرة الإيبيرية مستواها الخاص من التوطن، بعدة أنواع لا تُعرف إلا داخل المنطقة، وإن حلّت محلها أنواع أوسع انتشارًا من وسط أوروبا بحلول أواخر الإيوسين. وحافظ باليوثيريوم، في كلٍّ من الإيوسين الأوسط والمتأخر، على تنوع نوعي مرتفع وتحمّل تغيرات بيئية كبرى أفضت إلى تبدّل حيواني وقع مع بداية الإيوسين المتأخر.
كذلك، منذ أوصاف كوفييه، عرَّف كثير من علماء الطبيعة في أوروبا والأمريكتين أنواعًا عديدة من باليوثيريوم، بعضها صالح وبعضها أُعيد تصنيفه لاحقًا في أجناس أخرى، وبعضها الآخر عُدَّ في نهاية المطاف غير صالح. وقد حدَّث عالم المتحجرات الألماني ينس لورنتس فرانزن تصنيف الجنس بفضل تمييزه أنواعًا فرعيةً كثيرةً ضمن أطروحته سنة 1968، وهي أنواع فرعية قبلها علماء المتحجرات الآخرون لاحقًا. ويُعرف اليوم ستة عشر نوعًا، للكثير منها أنواع فرعية متعددة. وفي سنة 1992، ميَّز عالم المتحجرات الفرنسي جان-ألبير ريمي جنسين فرعيين يُصنَّف إليهما أغلب الأنواع اعتمادًا على تشريح الجمجمة: باليوثيريوم المتخصص والجنيس الآخر الأقل تخصصًا.
تاريخ الدراسة
الجمجمة
كذلك، والفرع الأفقي من الفك السفلي سميك ومرتفع إجمالًا وله ارتفاق فكي مستطيل، لكن عرضه وشكل منطقته السفلى يتباينان بحسب النوع. وهو عريض في منطقتيه الأمامية والخلفية ومنخفض مقارنةً بالخيول. ومفصل عظم الحرشفة والفك السفلي في باليوثيريوم منخفض مقارنةً بمفصلي و. والناتئ الزاوي، الواقع فوق زاوية الفك السفلي، تمنعه ثلمة الفك السفلي من مزيد من التوسع، وهو جيّد التطور في مؤخرته كما في خيليات الباليوجين.
وفي هذا السياق، تتميز الباليوثيريات عن سائر مفردات الأصابع أساسًا بخصائص الجمجمة؛ فمحاجر العين مفتوحة على نطاق واسع من الخلف عمومًا، وتقع في منتصف الجمجمة أو أمامه قليلًا، وعظام الأنف سميكة إلى سميكة جدًا. ويتميز باليوثيريوم نفسه بعدة سمات قحفية تفصله عن الأجناس الباليوثيرية الأخرى، منها استطالة الناتئ الوجني الممتد من عظم الحرشفة امتدادًا إلى عظم الفك العلوي، ووجود مفاغرة (وصلة تشريحية بين ممرين) قرب العظم الوتدي، وتطور عضلة صدغية بارزة. ويتراوح طول قاعدة القحف بين 150 و520 ملم بحسب النوع.
من جهة ثانية، وتكافئ نسب ارتفاع الجمجمة ووزنها في باليوثيريوم على وجه التقريب نظيراتها في سائر أصنوفات الخيليات الشكل؛ فأعضاء الفوق فصيلة ذوو مناطق وجهية أمامية قصيرة نسبيًا. وتبلغ قمة الجمجمة أقصى ارتفاعها في المنطقة الخلفية البعيدة، وإن كان ذلك لا يُلاحَظ في . وقد يكون العرف السهمي بارزًا، ويتوقف تطوره على عمر الفرد وجنسه. وخلافًا للخيليات الشكل الأخرى التي يمتد أقصى عرض للجمجمة فيها فوق الجذر الأمامي للقوسين الوجنيين المتوازيين، يمتد أقصى عرض جمجمة باليوثيريوم وأغلب الباليوثيريات (عدا ) إلى الخلف حتى مفصل عظم الحرشفة والفك السفلي. ومحجر عين باليوثيريوم، بخلاف سائر الخيليات الشكل، أصغر نسبيًا ويقع إلى حدٍّ ما أمام منتصف طول الجمجمة، وهي سمة قد تزداد في حالة . وعلى غرار سائر خيليات الباليوجين الشكل، تحاذي الحافة الأمامية للمحجر الضرس M1 أو M2 بينما تتسع المنطقة الخلفية. وخلافًا لأغلب الباليوثيريات، تمتد فتحة الأنف حتى الضاحك P3 كحدٍّ أدنى، أو حتى الحافة الأمامية للمحجر فوق M3 في حالة . ومع تباين أشكال عظام الأنف ونسبها بحسب النوع، فإنها تمتد إلى ما وراء P1 عند البالغين، وأحيانًا حتى الناب كما في الخيول. والحفرتان الصدغيتان كبيرتان لكن نسبتهما متباينة. والقبة القحفية عريضة ومقبَّبة وأوسع من الجمجمة إجمالًا.
الأحياء القديمة
من جهة ثانية، ويشهد التنوع الواسع في أشكال الأطراف الأمامية للباليوثيريات على تفاوت درجات العَدْو بين الأنواع المختلفة. وكانت أطرافها الخلفية أصغر عمومًا من الأمامية، بما يوحي بميل أقل إلى العَدْو نتيجة تكيّفها مع البيئات المغلقة المستقرة. وفي سنة 2000، اقترح جوزيبي سانتي أن باليوثيريوم ربما كان قادرًا على الوقوف على قائمتيه الخلفيتين للوصول إلى النباتات المرتفعة. ولربما استطاع أن يرعى نباتات على ارتفاع يتجاوز المترين وهو على أربع، وأن يبلغ إذا انتصب على قائمتيه الخلفيتين ارتفاعًا يصل إلى 3 أمتار بل حتى 3.5 متر. غير أن جيري جيه. هوكر حاجّ بأنه لا دليل على مثل هذا الانتصاب الاختياري في خلافًا لمعاصره من مزدوجات الأصابع . ويوحي طول عنق بأنه ربما رعى نباتات أعلى و/أو شرب الماء من أسفل. وكان باليوثيريوم من أضخم الثدييات التي سكنت أوروبا في الإيوسين الأوسط إلى المتأخر، ولم تبلغ أحجامًا مماثلةً أو أكبر إلا قلة من المجموعات الثديية المعاصرة مثل اللوفيودونتيات والأنوبلوثيريات وباليوثيريات أخرى. وخلافًا للخيليات والخيليات الشكل البدائية، تؤدي أضراس الباليوثيريات المتأخرة وظيفتين معًا: جزّ الطعام على الجانب الشدقي ثم سحقه على الجانب اللساني، وهو تكيّف لأنظمة غذائية عاشبة أوسع. ولدى الجنسين المتقدمين أسنان قصيرة التاج (براكيودنتية)، بما يوحي بأنهما كانا في الأغلب آكلي أوراق لا آكلي ثمار، بدليل قلة الحُدَيبات المستديرة على أضراسهما. ومع أن الجنسين ربما أدخلا بعض الثمار في نظاميهما الغذائيين، فإن ازدياد بلى الأسنان اللساني في يدل على أنه أكل ثمارًا أكثر من باليوثيريوم. ونظرًا لميلهما المرجَّح إلى رعي النباتات المرتفعة، بدليل طول عنقيهما وبيئات الغابات التي سكناها، فمن غير المرجّح أن المعادن — التي تُستهلك عادةً من رعي نباتات الأرض — قد أثّرت تأثيرًا كبيرًا في بلى أسنان أيٍّ منهما. وقد يكون بلى الأسنان في الجنسين ناتجًا عن مضغ بذور الثمار. ويُرجَّح أن باليوثيريوم أكل أطعمةً أكثر ليونة كالأوراق الفتية والثمار اللحمية التي قد تحوي بذورًا صلبة، بينما مال إلى التهام الأطعمة الأقسى كالأوراق الأكبر سنًا والثمار الأصلب. ويدعم تفسيرَ أن باليوثيريوم استهلك مزيدًا من المواد الورقية والخشبية وقدرًا أقل من الثمار مقارنةً بـ اختلافُ وظيفتيهما المضغيتين نوعًا ما، وكون باليوثيريوم أكفأ في جزّ الطعام.
إضافةً إلى ذلك، تتباين أنواع باليوثيريوم تباينًا كبيرًا في الحجم والشكل والبنية؛ فهياكل و و كانت متينةً نسبيًا، في حين كان هيكل أنحل، مما يوحي بازدياد ميله إلى العَدْو. ولربما غلَّب التاريخ التطوري للباليوثيريات حاسة الشم على حاستي البصر والسمع، بدليل صغر محاجر العين وغياب جهاز سمعي متطور ظاهريًا. وربما مكّنت حاسة الشم القوية هذه الحيوانات من تتبع قطعانها، بما يشير إلى سلوك اجتماعي (قطعاني).
البيئة القديمة
التصنيف المبكر والتصويرات
ومن جهة أخرى، في سنة 1804، أكَّد كوفييه أن الجمجمة التي سبق أن أبلغ عنها لامانون تعود إلى أحد الثدييات، إذ تحفظ طقمًا كاملًا من 44 سنًّا تشبه أسنان وحيدات القرن والوبريات. وإذ تبيَّن له اختلاف الجمجمة عن سائر الثدييات، أنشأ جنسًا ونوعًا جديدين هما . واسم الجنس معناه «الوحش القديم»، وهو مركب من البادئة اليونانية بمعنى «قديم»، واللاحقة بمعنى «وحش» أو «حيوان بري». ودحض كوفييه فرضية لامانون القائلة إن باليوثيريوم كان برمائيًا قارتًا، ورجّح أنه كان ذا خرطوم شبيه بخرطوم التابير.
من جهة ثانية، تُوجد ثلاث منحوتات تمثّل و و«» (= ) ضمن معرض منحوتات كريستال بالاس للديناصورات في متنزه كريستال بالاس بلندن، وهو معرض مفتوح للجمهور منذ سنة 1854 وأنجزه النحّات الإنجليزي بنجامين ووترهاوس هوكينز. وقد صُوِّرت منحوتتا ، وهي الأكبر بين الثلاث، و المتوسطة في وضع الوقوف، في حين تصوّر منحوتة «» الأصغر حيوانًا جالسًا. ويعكس تشابه النماذج مع التابير التصورات المبكرة لمظهر باليوثيريوم الحي، غير أن المنحوتات تختلف عن التابير الحية في أمور عدة، كالوجوه الأقصر والأعلى، وارتفاع موضع العينين، والسيقان الأنحل، والأذناب الأطول، ووجود ثلاثة أصابع في الأطراف الأمامية بدل أربعة عند التابير.
في هذا الإطار، واعتبارًا من سنة 1968، عُدَّت أربعة من أنواع باليوثيريوم التي سمّاها كوفييه صالحةً وبقيت مصنَّفةً في باليوثيريوم (وهي و و و)، وستة أنواع كانت صالحةً لكنها أُعيد تصنيفها في نهاية المطاف في أجناس مختلفة على يد علماء متحجرات مختلفين (وهي و و و و و)، وثلاثة عُدَّت غير صالحة (وهي و و).
إضافةً إلى ذلك، ومن بين المنحوتات الثلاث، تُعد الأشبه بالتابير، وقد بقيت سليمةً في أغلبها؛ وقد صُوِّرت بجلد سميك ووجه وخرطوم نحيلين، بما يمثّل تصورات قديمة عن كونها حيوانًا بطيئًا. أما منحوتة الأصلية فآخر ما عُرف عنها صورة تعود إلى سنة 1958 قبل أن تُفقد لاحقًا (واستُبدل بها نموذج جديد سنة 2023)؛ وتكشف الصورة أنها كانت الأكبر بين الثلاث، ذات بنية متينة وعضلية بعينين كبيرتين غائرتين، ورأس كبير نسبيًا، وسيقان ضخمة، وخرطوم عريض ينزل أسفل الشفة السفلى، ويبدو أن تشريحها العام مبني على الفيلة. وتشير الأبحاث الحديثة، بالمقارنة، إلى أن باليوثيريوم لم يكن له خرطوم قط، خلافًا للأعمال السابقة.
كذلك، في المدة الممتدة من 1804 إلى 1824، أنشأ كوفييه ما مجموعه 13 نوعًا من باليوثيريوم اعتمادًا على مواد الجمجمة والأسنان وما بعد الجمجمة. فأنشأ ثاني هذه الأنواع، ، سنة 1804، موضحًا أن أسنانه مماثلة لأسنان لكنها أكبر حجمًا. وعند وصفه النوع الثالث الصغير الحجم، ، بدأ يركّز على دراسة المواد التالية للجمجمة لا على مواد الجمجمة والأسنان وحدها. وفي سنة 1805، أنشأ كوفييه النوع استنادًا إلى القوائم الأمامية الثلاثية الأصابع، التي أشبهت التابير ووحيد القرن في شكل عظام مشط اليد. وفي سنة 1812، سمَّى نوعًا آخر هو اعتمادًا على عظام مشط يد أصغر قليلًا من عظام .
وعلى صعيد آخر، كما أُدرِج الجنس ضمن نماذج قديمة من التوجه التطوري لنظرية تطور الحصان، بدأها البيولوجي البريطاني ريتشارد أوين منذ سنة 1851، وتبعه علماء طبيعة أوروبيون آخرون في القرن التاسع عشر مثل جان ألبير غودري وفلاديمير كوفاليفسكي.
في هذا الإطار، وقد أثبت باليوثيريوم أنه اكتشاف مهم لعلم المتحجرات من جوانب أخرى عدة؛ فمن ناحية، أُدرِج كلٌّ من رسم إعادة البناء الهيكلي وإعادة التصوير الحي في أعمال كوفييه ضمن الكتب والمراجع الدراسية حول العالم حتى القرن العشرين.
من جانب آخر، في سنة 1812، عرَّف كوفييه باليوثيريوم بأنه لا يضم إلا أنواعًا ثلاثية الأصابع. كما تكهّن بالمظهر الحي وسلوك عدة أنواع منه، لكنه نبَّه إلى أن هذه التأويلات محدودة بسبب تجزُّؤ المواد الأحفورية. فرجّح أن كان يشبه تابيرًا في حجم الحصان ذا شعر متناثر، وأن و كانا كذلك بمظهر شبيه بالتابير مع سيقان وأقدام أطول نسبيًا في الأخير. ونشر كوفييه كذلك إعادة بناء هيكلية افتراضية للنوع ، وافترض أنه كان أصغر من الخروف وربما عدّاءً نظرًا لسيقانه النحيلة. وأخيرًا نظَّر إلى أن كان أضخم الأنواع بنيةً. وفي سنة 1822، نشر كوفييه إعادة بناء لهيكل ، مبيِّنًا أنه كان بحجم وحيد القرن الجاوي، ممتلئ البنية، وذا رأس ضخم. وفي العام نفسه، صُوِّر باليوثيريوم في رسوم لعالم المتحجرات الفرنسي شارل ليوبولد لوريار بإشراف كوفييه.
التصنيف الداخلي
كذلك، منذ سنة 1968، حُدِّدت لكثير من أنواع باليوثيريوم أنواع فرعية متعددة تبررها اختلافات متنوعة داخل النوع الواحد. ومنذ سنة 1992، يُعترف رسميًا بجنيسين لباليوثيريوم. الجنيس الأول هو ، ويضم النوع النمطي إلى جانب و و و و و. والجنيس الثاني هو ، ويضم النوع النمطي وكذلك ، وسُمّي تكريمًا لمراجعة فرانزن لباليوثيريوم. ويتمايز الجنيس عن الجنيس بسمات متخصصة؛ فمثلًا، محاذاة محجر عين لمقدمة منتصف طول الجمجمة سمة متخصصة مقارنةً بمحجر المحاذي لمنتصف طول الجمجمة على نحو أكبر. وعدة أنواع من باليوثيريوم مجزأة إلى حدٍّ يمنع وضعها في أي من الجنيسين.
الوصف
إضافةً إلى ذلك، والجدول الآتي يورد جميع أنواع باليوثيريوم وأنواعه الفرعية الصالحة، والجنيس المصنَّف إليه كلٌّ منها، ووحدات الثدييات الباليوجينية (MP) التي سُجّلت فيها استنادًا إلى ظهورها في الرواسب الأحفورية، وواضعي الأصنوفات، وسنة تسميتها الرسمية:
آثار الأقدام
إضافةً إلى ذلك، وقد سُمّي نوعان أثريان من ؛ النوع الأثري النمطي هو المبني على المواد الفرنسية. وهذه الآثار أعرض (140 ملم) منها طولًا (115 ملم)، بأصابع تتباعد بعضها عن بعض بزوايا لا تقل عن 50°، ويبدو حافر الإصبع الثالث أعرض من حوافر الأصابع الخارجية. وقد رجّح إلينبرغر أن هذا النوع الأثري يطابق على نحو أوثق إما وإما . ووُصف نوع أثري ثانٍ هو من شرقي إيران، وهو يفتح باب احتمال أن الباليوثيريات قد امتد نطاقها الجغرافي إلى المنطقة بحلول الإيوسين الأوسط إلى المتأخر. وسُمّي تكريمًا لعالم الآثار الأحيائية وليام إيه إس سارجينت، ويوصف بأنه يُظهر إصبعًا أوسط مستديرًا نسبيًا أعرض وأطول من الأصابع الخارجية، وكفُّه أقل استطالةً من قدمه. كما سُجّلت آثار إضافية من حوض آبت-فوركالكييه في فرنسا، مؤرَّخة بالإيوسين الأوسط ووصفها جي. بيسونا وزملاؤه سنة 1969، بأنها أكبر من آثار ، ورُجّح أن النوع أنتجها.
وفي السياق ذاته، اقتُرح انتماء عدة أنواع من الآثار إلى باليوثيريوم، منها الجنس الأثري الذي سمّاه عالم المتحجرات بول إلينبرغر سنة 1980 استنادًا إلى آثار من أحجار جيرية بحيرية في محافظة غار الفرنسية. وقد رجّح إلينبرغر أن هذا الجنس الأثري يطابق على نحو أوثق أو cf. . ويوصف هذا الجنس الأثري بأنه أثر قدم قصير جدًا وثلاثي الأصابع، إذ يكون الإصبعان الخارجيان (الثاني والرابع) ضحلين بينما يكون الإصبع الأوسط (الثالث) أعمق انطباعًا. وهو يختلف عن جنس أثري باليوثيري آخر هو ، الذي اقتُرح أن هو صاحبه، بوجود انطباعات أصابع أصغر وأعرض. أما ، الذي ربما أنتجه أو ، فيختلف بانطباعات أصابع أصغر وأوسع تباعدًا، في حين أن ، المنسوب إلى وحيدات القرن، أثر بيضوي الشكل ذو ثلاثة أو خمسة أصابع. ويُعرف من كلٍّ من فرنسا وإيران، في حين لا يُعرف في الوقت الحالي إلا من إسبانيا.
الأسنان
وعلى صعيد آخر، تُشخَّص الباليوثيريات المتقدمة عمومًا بأن لها أضراسًا علويةً سيلينولوفودنتيةً (ذات حروف بين السيلينودنتية واللوفودنتية) وأضراسًا سفليةً سيلينودنتيةً (ذات حروف هلالية الشكل) متوسطة التاج في ارتفاعها. وتبرز الأنياب بروزًا قويًا وتفصلها عن الضواحك فُرَج متوسطة إلى طويلة، وعن القواطع فُرَج قصيرة في كلٍّ من الطقمين العلوي والسفلي. أما بقية الأسنان فمتزاوجة متقاربة في الصفّين العلوي والسفلي. والصيغة السنية لباليوثيريوم هي 3.1.4.3 / 3.1.4.3 بمجموع 44 سنًا، بما يتسق مع الصيغة السنية البدائية لثدييات المشيميات في مطلع الباليوجين وأواسطه.
كذلك، وتميل الضواحك والأسنان اللبنية السابقة لها إلى أشكال متأضرسة (أي شبيهة بالأضراس)، وتظهر عليها حُدَيبات هيبوكونية حديثة النشوء. وتميّز أشكالُ الضواحك اللبنية (dP) في يوافع باليوثيريوم وسائر الباليوثيريينات هذه المجموعةَ عن الباخينولوفينات الأقدم، إذ إن dP2–dP4 عند يوافع و متأضرسة ورباعية الحُدَيبات كلتاهما (وإن كان dP1 مثلثيًا). وتميل أنواع الإيوسين المتأخر من باليوثيريوم إلى امتلاك ضواحك أكثر تأضرسًا. وتتألف الضواحك غير المتأضرسة من أربع إلى خمس حُدَيبات (واحدة إلى اثنتين خارجية، واثنتان وسطيتان، وواحدة داخلية)، بينما تحمل الضواحك المتأضرسة والأضراس ستّ حُدَيبات (اثنتان خارجيتان، واثنتان وسطيتان، واثنتان داخليتان). والأضراس العلوية متوسطة التاج (أقصر من أضراس الخيليات الحديثة) ولها حُروف خارجية يبلغ ارتفاعها نحو ضعف ارتفاع الحُدَيبات الداخلية وتنحني على هيئة حرف W. والحروف الخارجية على شكل W مؤلفة من هلالين مفصليين. والضواحك المتأضرسة والأضراس السفلية أعرض بنحو النصف من نظيراتها العلوية. وتزداد سماكة الحُدَيبة الميزوستيلية الموجودة في الأضراس من M1 إلى M3. والفصوص اللسانية في الأضراس العلوية محاذية للحروف الخارجية محاذاةً وثيقة.
من جانب آخر، والقواطع مجرافية الشكل، وتُستعمل — كما في الخيول الحديثة — للمضغ بزوايا قائمة نسبةً إلى محاورها الطولية؛ وليست لها وظائف قطع، بل تُستعمل لإمساك الطعام على نحو يشبه إمساك الملقط للأشياء. والأنياب كبيرة نسبيًا وخنجرية الشكل، ولعلّها لم تُستعمل للقطع أو المضغ نظرًا لاتجاهها، لكنها ربما استُخدمت في الدفاع عن النفس وفي القتال بين أفراد النوع الواحد. وقد يرتبط قِصَر الفرجة خلف النابية في باليوثيريوم وفي الفُصيلة الفرعية الخيلية الأنكيثيريينات بازدياد حجم الجسم، وربما يعود هذا الاتجاه إلى ضرورة تحسين أداء المضغ عبر تأضرس الضواحك وازدياد حجمها النسبي. وتتقلص الفُرَج خلف النابية تقلصًا شديدًا في الأنواع المبكرة مثل ؛ أما في الأنواع المتأخرة فتتراوح من صغيرة ( و) إلى كبيرة ( و). ويشهد فصل أسنان الخد عن القواطع والأنياب على استقلال وظائفها المضغية وتخصصها.
التصنيف والتطور
ومن جهة أخرى، يظهر أول سجل معروف لمفردات الأصابع في اليابسة الأوروبية في وحدة MP7 من نطاقات الثدييات الباليوجينية. وخلال هذه الوحدة الزمنية، ظهرت لأول مرة أجناس عديدة من الخيليات الشكل البدائية مثل و و و. واستمر أغلب هذه الأجناس إلى وحدات MP8–MP10، وظهرت باخينولوفينات مثل و بحلول MP10. وشهدت وحدة MP13 ظهور باخينولوفينات متأخرة مثل و، إلى جانب أول سجلات مؤكدة للباليوثيريينات مثل باليوثيريوم و. واقتُرح أن الباليوثيري قد يكون ظهر بحلول MP12. وبحلول MP14، بدأت الفُصيلة الفرعية تتنوع، وحلّت الباليوثيريينات عمومًا محل الباخينولوفينات، وإن بلغت الأخيرة الإيوسين المتأخر.
كذلك، وإضافةً إلى أجناس الباليوثيريات الأوسع انتشارًا مثل وباليوثيريوم و، التي بلغت بعض أنواعها أحجامًا متوسطةً إلى كبيرة، ظهرت بحلول الإيوسين الأوسط أجناس باليوثيرية أخرى مستوطنة في شبه الجزيرة الإيبيرية، مثل و و.
إضافةً إلى ذلك، وكما تُظهر الشجرة النشوئية أعلاه، فإن الباليوثيريات تظهر بوصفها فرعًا أحادي النمط، بمعنى أنها لم تترك أي مجموعات منحدرة متقدمة في تاريخها التطوري. ويُعرَّف بمعناه الضيق بأنه من أوائل تفرعات الفصيلة وعضو في الباخينولوفينات. أما «» ، الذي كان سابقًا ضمن الجنس غير الصالح الآن ، فيُعرَّف بأنه صنف شقيق للباليوثيريات الأكثر تقدمًا. ويُعرَّف الجنسان و، وكلاهما باخينولوفيني، بأنهما جنسان أحاديّا النمط. أما الباخينولوفينان الآخران و فيؤلّفان فرعًا شبه أحادي النمط بالنسبة إلى أعضاء الفُصيلة الفرعية المتقدمة الأحادية النمط الباليوثيريينات ( و وباليوثيريوم)، مما يجعل الباخينولوفينات فُصيلةً فرعيةً شبه أحادية النمط.
وفي هذا الصدد، باليوثيريوم هو الجنس النمطي لفصيلة الباليوثيريات، التي تُعد عمومًا واحدةً من فصيلتين رئيسيتين من الخيليات الشكل ضمن الفوق فصيلة الخيليات الشكل ، والأخرى فصيلة الخيليات . وقد اقترح بعض الباحثين، بدلًا من ذلك، أن الخيليات أوثق صلةً بالتابيريات الشكل منها بالباليوثيريات. وتُقسَّم الباليوثيريات عادةً إلى فُصيلتين فرعيتين هما الباليوثيريينات والباخينولوفينات ؛ وحاجّ قلة من الباحثين، بدلًا من ذلك، بأن الباخينولوفينات أوثق صلةً بمجموعات أخرى من مفردات الأصابع منها بالباليوثيريينات. كما عدّ بعض الباحثين الپلاجيولوفينات فُصيلةً فرعيةً مستقلةً، بينما يضمّ آخرون أجناسها إلى الباليوثيريينات. واقتُرح كذلك أن ينتمي باليوثيريوم إلى قبيلة الباليوثيرينيات ، وهي إحدى ثلاث قبائل مقترحة ضمن الباليوثيريينات إلى جانب الليبتولوفينيات والپلاجيولوفينيات . وكان الانتشار الأوراسي للباليوثيريات مغايرًا للخيليات، التي يُعتقد عمومًا أنها كانت إشعاعًا مستوطنًا في أمريكا الشمالية. وبعض أكثر الخيليات الشكل بدائيةً في اليابسة الأوروبية غامضة القرابة، إذ يُظن أن بعض أجناسها قد ينتمي إلى الخيليات. وتُعرف الباليوثيريات بأنها عاشت في أوروبا الغربية خلال أغلب الباليوجين، لكنها وُجدت كذلك في أوروبا الشرقية، وربما الشرق الأوسط، وفي حالة الباخينولوفينات في آسيا.
كذلك، وفيما يأتي الشجرة النشوئية لعدة أعضاء من فصيلة الباليوثيريات إضافةً إلى ثلاث مجموعات خارجية، كما وضعها ريمي سنة 2017 وتبعه فيها ريمي وزملاؤه سنة 2019:
الهيكل التالي للجمجمة
من جهة ثانية، ولمعظم أنواع باليوثيريوم أطراف خلفية وأمامية ثلاثية الأصابع، خلافًا للباليوثيريات الأقدم ذات الأطراف الأمامية الرباعية الأصابع والخلفية الثلاثية. وربما كان لـ طرف أمامي رباعي الأصابع، كما يدل على ذلك كفٌّ نُسب إليه مبدئيًا. ويختلف باليوثيريوم عن في رسغيه الطويلين الضيّقين وفي عظام مشط يده المتقاربة الأطوال والمتطورة إلى سلاميات ظفرية عريضة. ويوحي شكل القدم الثلاثية الأصابع، مع كون الأصابع الثلاثة جميعها وظيفية، بحركة رقمية (المشي على الأصابع).
ومن ناحية أخرى، يُعرف تشريح باليوثيريوم التالي للجمجمة على أفضل وجه من هيكل المكتشف في مورمويرون. ويتألف العمود الفقري من سبع فقرات عنقية كبيرة، وسبع عشرة فقرةً صدرية، وست فقرات قطنية، وست فقرات عجزية، وخمس عشرة فقرةً ذنبية. ويبلغ طول الفقرات العنقية المكوِّنة للعنق نحو 65 سم، في حين يبلغ طول الفقرات الذنبية المكوِّنة للذيل نحو 35 سم. والعجز مثلثي يشبه عجز الخيليات، لكنه أوسع قليلًا في منطقته الأمامية. ولربما كان لـ أربعة وثلاثون ضلعًا إجمالًا استنادًا إلى عدد الفقرات الصدرية. وكما في الخيليات، فإن الأضلاع الأمامية قوية ومسطَّحة. ولربما كان الجزء الخلفي من القفص الصدري أعرض منه في الخيول، وقريبًا نوعًا ما من قفص التابير ووحيد القرن، لكنه لم يكن بطول قفص الأخير. والأضلاع منفصلة عن عظم القص الذي يقارب حجم القفص الصدري نفسه.
في هذا الإطار، ولـ عظام أطراف قوية ومكتنزة عمومًا. أما عظما فخذ و، بالمقارنة، فأقل متانة. ولباليوثيريوم بكرة عظم الكاحل أكثر استقامةً وأقل تقعرًا من بكرة . وعظم العقب شبه مستطيل الشكل لكنه أوسع قليلًا في طرفه الخلفي. والعظم النردي مرتفع وضيق، على غرار عظم .
في هذا الإطار، ويُظهر باليوثيريوم قدرًا استثنائيًا من التباين في شكل مشط يده الثالث وأبعاد كفّه. فلـ عظام طرف أمامي متينة جدًا ويد قصيرة مكتنزة، مما يوحي ببنية ممتلئة. ويشبه و التابير، ولا سيما التابير الجبلي ، في بنية أطرافهما الأمامية. ولـ كعبرات وعظام مشط يد أقل نحولًا من نظيرات ، ومن ثمّ فهي مماثلة لنظيرات التابير الحديثة. أما فيبدو، إلى جانب ، أكثر الباليوثيريات عَدْوًا بفضل عظام مشط يده المستطيلة النحيلة. ولـ شكل قدم أكثر تفردًا مقارنةً بسائر أنواع باليوثيريوم بسبب قدميه الأضيق والأعلى وعظام مشطه الأطول. ويؤيد شكلُ عظم العضد كذلك تكيفات العَدّاءة. وعظم مشط القدم الأوسط أكبر وأمتن من البقية. ويبدو الإصبع الرابع لـ مقوَّسًا قليلًا وأطول قليلًا من الإصبع الثاني.
الحجم
علاوةً على ذلك، وفي سنة 2015، حسب ريمي كتلة الجسم لعدة أنواع من مفردات الأصابع الأوروبية في الإيوسين استنادًا إلى صيغة اقترحتها في الأصل كريستين جانيس سنة 1990. فقدّر أن النوع الصغير ربما لم تتجاوز كتلته 36 كلغ، وأن ربما بلغ متوسط كتلته نحو 61 كلغ. أما aff. فربما بلغت كتلته 196 كلغ، بينما قُدِّر بنحو 206 كلغ، وقُدِّر بكتلة أثقل بكثير بلغت 447 كلغ. وبحسب بيري بيراليس-غوغينولا وزملائه سنة 2022، ربما تجاوزت كتلة أكبر الأنواع، ، 700 كلغ. واقترح ماكلارن ونايفلارتس تقديرًا أدنى نوعًا ما للنوع الكبير بلغ 240.3 كلغ.
ومن ناحية أخرى، يضم باليوثيريوم أنواعًا متباينة الأحجام، يتراوح طول قاعدة جمجمتها بين 150 و520 ملم. ويتراوح طول صف الأسنان من P2 إلى M3 من 64 ملم في أصغر الأنواع، ، إلى 217 ملم في أكبرها، . و، الذي كان يُعدّ سابقًا أكبر الأنواع، قريب من حجمًا، إذ قيس أحد صفوف أسنانه بـ208.6 ملم. ويُقدَّر بحجم تابير برازيلي دون بالغ ، أكبر من الذي كان بحجم اليحمور. ويدل هيكل المستخرج من مورمويرون على أن الأفراد ربما بلغوا نحو 1.3 متر عند الكتف و2.52 متر طولًا. ويقيس رأسه وعنقه معًا 1.04 متر، ويقيس طرفه الأمامي (من العضد إلى الحافر) 1.04 متر كذلك.
مراجعات القرن العشرين
وفي السياق ذاته، في سنة 1904، أنشأ عالم المتحجرات السويسري هانس غيورغ شتيهلين النوع استنادًا إلى فك علوي محفوظ في متحف تولوز أصله من رواسب حجر رملي في كاستر، كما أسند إليه جمجمتين مهشَّمتين نوعًا ما. وفي دراسته الإفرادية عن الباليوثيريات، المنشورة في العام نفسه، عدَّ شتيهلين أغلب أنواع باليوثيريوم صالحةً على الأرجح، لكنه لاحظ إحجام أغلب المصنِّفين عن إبطال الأنواع التي أنشأها كوفييه. وعدَّ صورةً من صور ، ووصف صورتين من من شظايا فكوك من لا ديبروج. كما سمّى ثلاثة أنواع جديدة هي ، استنادًا إلى مواد سنّية من بلدية أوبرغوسغن السويسرية؛ و، استنادًا إلى مكتشفات جديدة من مورمون وفكٍّ سفلي عرّفه بيكتيه سنة 1869؛ و، من بلدية إيغركينغن، الذي وصفه بأن ضواحكه بدائية. وفي سنة 1917، عرَّف عالم المتحجرات الفرنسي شارل ديبيريه نوعين إضافيين من باليوثيريوم هما و.
من جهة ثانية، وفي سنة 1975، أنشأت عالمة المتحجرات الإسبانية ماريا لورديس كازانوفاس-كلاديلاس النوع من فك علوي أيسر بأسنانه من موقع روك دي سانتا الإسباني. وفي سنة 1980، أنشأت هي وخوسيه-فيسنتي سانتافي لوبيس نوعًا إيبيريًا ثانيًا هو من بلدية سوسيس الإسبانية اعتمادًا على فروق في الأسنان. وفي سنة 1985، سمّى عالم المتحجرات الفرنسي جان-ألبير ريمي نوعًا فرعيًا جديدًا هو تكريمًا لزميله عالم المتحجرات لوي تالر؛ وكانت هذه المستحاثات، المؤلفة من جمجمتين بفكيهما السفليين، من بلدة سانت-إتيان-دو-لولم.
إضافةً إلى ذلك، وفي سنة 1991، أنشأ كازانوفاس-كلاديلاس وسانتافي لوبيس النوع من مواد فك جزئية من موقع لاماكيكي في مدينة أوفييدو، ومنه اشتُق الاسم. وفي العام التالي 1992، اقترح ريمي إنشاء جنيسين لباليوثيريوم اعتمادًا على خصائص الجمجمة هما و. وفي سنة 1993، أنشأ عالم المتحجرات الإسباني ميغيل آنخل كويستا رويس-كولمينارس النوع استنادًا إلى أسنان من موقع مازاتيرون في حوض دويرو، وعدّه أكبر أنواع باليوثيريوم المعروفة. وفي سنة 1998، أنشأ كازانوفاس-كلاديلاس وآخرون النوع الفرعي من فك علوي أيمن مجزأ بأسنانه من سوسيس بإسبانيا، كما أبطلوا النوع الذي سُمِّي سابقًا وأعادوا نسبة مواده إلى .
وفي هذا الصدد، في سنة 1968، أجرى عالم المتحجرات الألماني الصاعد ينس لورنتس فرانزن، وكان حينها طالب دراسات عليا، مراجعات كبرى لباليوثيريوم في أطروحته. فأبطل عدة أنواع بوصفها أسماءً مشكوكًا فيها (وهي — الذي رُئي أنه كان وحيد قرن بدلًا من ذلك — و و و و و)، وجعل أنواعًا كثيرةً أخرى مرادفةً لأنواع قائمة: فجعل و مرادفةً لـ، و و لـ، و لـ، و و لـ، و لـ، و لـ. كما أبطل أنواعًا عديدةً أخرى كانت قد أُنشئت طوال القرن التاسع عشر ومطلع العشرين. وأنشأ النوع استنادًا إلى مستحاثات من موقع في كاستر، وأعاد تصنيف «» نوعًا من باليوثيريوم. وحوّل فرانزن كذلك بعض الأنواع إلى أنواع فرعية ( و و و)، وسمّى ستة أنواع فرعية إضافية.
الإيوسين المتأخر
من جهة ثانية، ويدل الموقع على أن الأنواع الفرعية المتعددة من باليوثيريوم تعايشت مع الهيربيتوثيري ، والثيريدوميَّين و، والإسكيرومي ، والزغبي ، والضباعانيَّين و، والأمفيكيوني ، والباليوثيريَّين و، والديكوبوني ، والكويروبوتامي ، والكيبوكويريَّين و، والأنوبلوثيريات ( و و)، والتابيرولي ، والسيفودونتيَّين و، والكاينوثيري ، والأمفيميريسي ، والأنثراكوثيري .
وفي هذا الصدد، تؤرِّخ وحدة الإيوسين المتأخر MP17 أول ظهور لعدة أنواع من باليوثيريوم، وهي و و و و و. واستمر النطاق الزمني لـ، المعروف أول مرة في MP16، حتى MP19، وظهر ظهوره الأول والوحيد في MP19. وامتد النطاق الزمني لبعض الأنواع الأخرى حتى MP19 ( و)، بينما دام بعضها حتى MP20 ( و و). وبحلول الإيوسين المتأخر، انتشرت أحدث أنواع باليوثيريوم في أنحاء أوروبا الغربية، بما فيها ما يُعرف اليوم بالبرتغال، وإسبانيا، وفرنسا، وسويسرا، وألمانيا، والمملكة المتحدة. ويُعرف الجنس كذلك شرقًا حتى حوض تراقيا في اليونان بالمنطقة الأوروبية الشرقية في الإيوسين الأوسط إلى المتأخر. وقد اختلفت حيوانات أوروبا الشرقية اختلافًا كبيرًا عن حيوانات أوروبا الغربية رغم وجود باليوثيريوم في المنطقتين معًا. ومن الممكن أن باليوثيريوم كان موزَّعًا شرقًا حتى شرقي إيران، تبعًا لصحة نسبة آثار الأقدام إليه. ويشير وجود باليوثيريوم في أوروبا الشرقية إلى وجود ترابط دوري بين بلقانوتوليا وسائر مناطق أوراسيا.
من جهة ثانية، وفي الإيوسين المتأخر، ظهرت كلٌّ من الكاينوثيريات والأعضاء المتقدمة من الأنوبلوثيرينات لأول مرة بحلول MP18. كما بلغت عدة مجموعات ثديية مهاجرة أوروبا الغربية بحلول MP17a–MP18، وهي الأنثراكوثيريات والهيانودونتينات والأمفيكيونيات . وإلى جانب الأفاعي والضفادع والسمندريات، يُعرف في أوروبا الغربية كذلك تجمع غني من السحالي من MP16 إلى MP20، يمثّل الإغوانيات والعظايات والوزغيات والحرذونيات والسقنقوريات والخرزيات والورليات، وكان أغلبها قادرًا على الازدهار في درجات حرارة أوروبا الغربية الدافئة.
في هذا الإطار، ويحوي موقع لا ديبروج المؤرَّخ بـMP18 في فرنسا سجلات أحفورية لعدة أنواع من باليوثيريوم، هي و و و و و.
هياكل باليوثيريوم
وفي هذا السياق، في سنة 1873، اكتشف الجيولوجي الفرنسي غاستون كازيمير فاسور أول هيكل كامل لباليوثيريوم، نُسب إلى ، من محجر جبس في بلدة فيتري سور سين. وكان المحجر ملكًا للمهندس المدني فوكس، الذي وهب الهيكل إلى المتحف الوطني للتاريخ الطبيعي بفرنسا. ووصف جيرفيه الهيكل في العام نفسه، فلاحظ أن العنق كان أطول من المتوقع وأن البنية كانت أقل اكتنازًا من بنية التابير ووحيد القرن. ويبلغ طول جمجمة العينة نحو 0.5 متر. وذكر عالم الطبيعة أن استخراج العينة كان صعبًا لكن أنجزه عدد من العمال المهرة. ومنذ وصفه، عُرض الهيكل في رواق علم المتحجرات والتشريح المقارن بالمتحف بوصفه مكوّنًا مهمًا وشهيرًا.
من جانب آخر، وفي أثناء القرن العشرين، استُخرج هيكل كامل ثانٍ للنوع من رواسب الجبس في بلدة مورمويرون الفرنسية، وأُرسل إلى القسم الجيولوجي في جامعة ليون، ووصفه بعد تحضيره الجيولوجي النمساوي فريدريك رومان سنة 1922، الذي نشر إعادة بناء للهيكل في دراسته الإفرادية سنة 1922. وبحسب عالم المتحجرات النمساوي أوثينيو أبيل سنة 1924، كان هذا أكمل هيكل معروف لباليوثيريوم ومن أكمل هياكل ثدييات مطلع حقب الحياة الحديثة المعروفة آنذاك، إذ لم يكن ينقصه سوى بضعة أضلاع وعظم الفخذ الأيسر.
تصنيف أواخر القرن التاسع عشر
كذلك، وفي سنة 1875، وصف عالم الطبيعة الفرنسي بول جيرفيه عظامًا وأسنانًا أحفوريةً من بلدة دامبلو الفرنسية، مشيرًا إلى أنها تعود إلى نوع أصغر من سائر أنواع باليوثيريوم وذي أبعاد سنّية مماثلة لأبعاد ، وأسند هذه المستحاثات إلى النوع المستحدث .
علاوةً على ذلك، وشهد القرن التاسع عشر كذلك إنشاء عدة أنواع جديدة من باليوثيريوم. ففي سنة 1853، أنشأ عالم المتحجرات الفرنسي أوغست بومل النوع استنادًا إلى عظام أطراف رآها أقل اكتنازًا من عظام . وفي دراسته العظمية (1839–1864)، أنشأ بلينفيل النوع ، مشيرًا إلى أن مستحاثاته جاءت من حوض جيروند وأن كوفييه لم يُشِر إليه إلا إشارةً عابرةً في منشور سنة 1825. وفي سنة 1863، أنشأ عالم الطبيعة الفرنسي جان-باتيست نوليه النوع استنادًا إلى فكٍّ سفلي غير مكتمل استُخرج من بلدة فيفييه-لي-مونتاني وأُودع في مجموعة أحفورية من مدينة كاستر. وفي سنة 1869، أنشأ عالما المتحجرات السويسريان فرانسوا جول بيكتيه دو لا ريف وألويس هومبرت النوع استنادًا إلى أضراس تشبه أضراس لكنها أصغر حجمًا. وفي العام نفسه، أنشأ عالم المتحجرات الألماني أوسكار فراس النوع استنادًا إلى أسنان رأى أن ميناءها متمايز.
وفي هذا السياق، في القرن التاسع عشر، أُعيد تصنيف عدد من أنواع باليوثيريوم التي سمّاها كوفييه في أجناس مختلفة. فأُعيد تصنيف «» في جنس مستقل هو على يد عالم المتحجرات الألماني هيرمان فون ماير سنة 1844. وفي دراسة عظمية أُنجزت بين 1839 و1864، أعاد عالم الطبيعة الفرنسي هنري ماري دوكروتاي دو بلينفيل إدراج «» و«» و«» أنواعًا تابعةً لجنس ، غير أن النوعين الأخيرين نُقلا في نهاية المطاف إلى جنسي و على التوالي في القرن العشرين. وفي سنة 1862، عدَّ عالم الحيوان السويسري لودفيغ روتيماير الجنسين المعروفين سابقًا و متمايزين عن باليوثيريوم، وهما يضمّان النوعين و على التوالي.
الانقراض
من جهة ثانية، واقترح الباحثون نظريات في سبب نجاة كلٍّ من و من حدث القطع الكبير حتى أوائل الأوليغوسين في حين انقرضت الأنواع الأخرى. فقد رأى سانتي أن أسنان باليوثيريوم وعضلاته القحفية لم تكن ملائمةً عمومًا لتبدُّلات البيئات المغلقة الناجمة عن التصحر واتساع البيئات الأكثر انفتاحًا، ومن ثمّ عجز عن التكيّف مع التغيرات البيئية. كما رأى أن ضعف بصره وسمعه وبطء حركته ربما جعله أشد عرضةً للّواحم المهاجرة. ثم أوضح الباحث أن ربما نجا مدةً أطول من سائر أنواع باليوثيريوم بفضل طبيعته العدّاءة، في حين ذكر ماكلارن ونايفلارتس على نحو مماثل أن كان أقدر على التكيّف مع البيئات المفتوحة الأكثر جفافًا ومع المفترسات المهاجرة من أقاربه بسبب صغر حجمه وطبيعته العدّاءة.
كذلك، وآذن حدث القطع الكبير بتبدُّل حيواني كبير سجّل وصول الأنثراكوثيريات والإنتيلودونتيات والمجترات (الجيلوسيات واللوفيوميريسيات )، ووحيدات القرن الشكل (وحيدات القرن والأمينودونتيات والإيغيسودونتيات )، واللواحم (الأمفيكيونيات المتأخرة والأمفيكينودونتيات والنيمرافيات والدببة )، وقوارض أوراسيا الشرقية (الإيومييات والهامستريات والقنادس )، والحشريات الحقيقية (القنافذ ).
وعلى صعيد آخر، يُعد حدث القطع الكبير الذي وقع في أواخر الإيوسين إلى أوائل الأوليغوسين (MP20–MP21) واحدًا من أكبر تبدّلات الحيوانات وأكثرها فجائيةً في حقب الحياة الحديثة بأوروبا الغربية، وقد تزامن مع أحداث تأثير مناخي نحو مناخات أبرد وأكثر فصليةً. وأفضى الحدث إلى انقراض 60% من سلالات ثدييات أوروبا الغربية، التي حلّت محلها لاحقًا حيوانات مهاجرة من آسيا. وكثيرًا ما يُؤرَّخ القطع الكبير مباشرةً عند حد الإيوسين-الأوليغوسين قبل 33.9 مليون سنة، وإن قدّر بعضهم أن الحدث بدأ فيما بعد بقليل، قبل 33.6–33.4 مليون سنة. ووقع الحدث في أثناء انتقال الإيوسين-الأوليغوسين أو بعده، وهو تحول مفاجئ من عالم دفيئة حار طبع أغلب الباليوجين إلى عالم أبرد جليدي منذ أوائل الأوليغوسين. ونتج الانخفاض الهائل في درجات الحرارة عن أول توسع كبير للصفائح الجليدية في القارة القطبية الجنوبية، الذي سبّب انخفاضات حادة في الضغط الجزئي لثاني أكسيد الكربون وانخفاضًا مقدَّرًا بنحو 70 مترًا في مستوى سطح البحر.
علاوةً على ذلك، ويتفق كثير من علماء المتحجرات على أن التجلد وما نجم عنه من انخفاضات في مستوى سطح البحر أتاحا مزيدًا من الهجرات بين بلقانوتوليا وأوروبا الغربية. وكثيرًا ما يُقترح مضيق تورغاي، الذي فصل في الماضي أغلب أوروبا عن آسيا، بوصفه الحاجز البحري الأوروبي الرئيسي قبل القطع الكبير، غير أن بعض الباحثين طعنوا في هذا التصور مؤخرًا محاجّين بأنه انحسر كليًا فعلًا قبل 37 مليون سنة، أي قبل انتقال الإيوسين-الأوليغوسين بأمد طويل. وفي سنة 2022، رجّح ألكسيس ليخت وزملاؤه أن القطع الكبير ربما كان متزامنًا مع تجلد Oi-1 (قبل 33.5 مليون سنة)، الذي يسجّل تراجعًا في ثاني أكسيد الكربون الجوي، معزِّزًا التجلد القطبي الجنوبي الذي كان قد بدأ فعلًا بحلول انتقال الإيوسين-الأوليغوسين.
كذلك، وقرّر سارة سي. جومون وزملاؤها أن بعض الحيوانات ربما وصلت متأخرةً، ومن ثمّ قد لا تكون أدّت أدوارًا في الانقراضات. وخلصوا إلى أن تغيّر المناخ، الذي أدى إلى ازدياد الفصلية وتغيرات في توافر الغذاء النباتي، جعل بعض الباليوثيريات ومزدوجات الأصابع عاجزةً عن التكيّف مع التغيرات الكبرى فانقرضت.
إضافةً إلى ذلك، وتؤرِّخ وحدة MP20، الأخيرة قبل القطع الكبير، آخر ظهور لأغلب أنواع باليوثيريوم، وهي و و. ونجا النوع من حدث القطع الكبير بدليل ظهوره في MP21، مما يجعله آخر ممثِّل لجنسه قبل انقراضه. وقد دمّر الانقراض والتبدُّل الحيواني كثيرًا من الحيوانات المستوطنة في أوروبا الغربية بدفعه أجناسًا ثديية عديدة إلى الانقراض، وتُعزى أسبابه إلى التفاعلات مع الحيوانات المهاجرة (المنافسة والافتراس)، والتغيرات البيئية الناجمة عن تبرُّد المناخ، أو إلى مزيج من العاملين.
الإيوسين الأوسط
إضافةً إلى ذلك، وانقطعت الوصلات البرية بين أوروبا الغربية وأمريكا الشمالية نحو 53 مليون سنة مضت. ومن مطلع الإيوسين حتى حدث انقراض القطع الكبير (قبل 56–33.9 مليون سنة)، كانت أوراسيا الغربية مقسَّمةً إلى ثلاث كتل يابسة: أوروبا الغربية (أرخبيل)، وبلقانوتوليا (الواقعة بين بحر باراتيثس شمالًا ومحيط نيوتيثس جنوبًا)، وأوراسيا الشرقية. ومن ثمّ كانت حيوانات أوروبا الغربية الثديية الهولاركتيكية معزولةً في أغلبها عن الكتل اليابسة الأخرى، بما فيها غرينلاند وأفريقيا وأوراسيا الشرقية، مما أتاح نشوء التوطن. ولذلك كانت ثدييات أوروبا في الإيوسين المتأخر (وحدات MP17–MP20 من نطاقات الثدييات الباليوجينية) منحدرةً في أغلبها من مجموعات مستوطنة تعود إلى الإيوسين الأوسط.
من جانب آخر، ساد في أغلب الإيوسين مناخ دفيئة رطب ذو بيئات مدارية وأمطار غزيرة متواصلة. وقد ظهرت الرتب الثديية الحديثة، ومنها مفردات الأصابع ومزدوجات الأصابع والرئيسيات (أو رتيبة الرئيسيات الحقيقية)، منذ مطلع الإيوسين، وتنوعت بسرعة وطوّرت أسنانًا متخصصةً في أكل الأوراق. أما الأشكال القارتة فإما تحولت في أغلبها إلى أنظمة غذائية ورقية وإما انقرضت بحلول الإيوسين الأوسط (قبل 47–37 مليون سنة) إلى جانب «اللقمياتيات» العتيقة. وبحلول الإيوسين المتأخر (قبل نحو 37–33 مليون سنة)، تحوّلت أسنان أغلب أشكال ذوات الحوافر من الحُدَيبات البونودنتية (المستديرة) إلى حروف قاطعة (أي لوفات) للأنظمة الغذائية الورقية.
وفي السياق ذاته، ظهر باليوثيريوم لأول مرة بالنوع في وحدة MP13. وكان حينها يتعايش مع مفردات أصابع (الباليوثيريات واللوفيودونتيات والهيراكيات )، ومزدوجات أصابع غير مستوطنة (الديكوبونيات والتابيروليات )، ومزدوجات أصابع أوروبية مستوطنة (الكويروبوتاميات — وإن كانت ربما متعددة الأصل — والكيبوكويريات والأنوبلوثيريات)، ورئيسيات (الأداپيات ). وظهر كلٌّ من الأمفيميريسيات والسيفودونتيات لأول مرة عند مستوى MP14.
في هذا الإطار، ويُسجَّل من موقع مازاتيرون الإسباني إلى جانب السلحفاتين و، والتمساح المجاطري ، والباوروسوكي ، والأداپوي ، والأومومي ، والسودوسكيوري ، والثيريدوميَّين و، والضباعاني ، والأنوبلوثيريات ( وcf. )، والسيفودونتيات (cf. )، وباليوثيريات أخرى ( و و و و و).
من جهة ثانية، وبعد MP16، وقع تبدُّل حيواني آذن باختفاء اللوفيودونتيات والهيراكيات الأوروبية، وبانقراض جميع تماسيح الشكل الأوروبية عدا التمساح المجاطري . وتُعزى أسباب هذا التبدُّل إلى تحول من بيئات رطبة شديدة المدارية إلى غابات أكثر جفافًا واعتدالًا ذات مناطق مفتوحة ونباتات أشد كشطًا. وقد كيّفت الحيوانات العاشبة الناجية أسنانها واستراتيجياتها الغذائية تبعًا لذلك لتتلاءم مع النباتات الكاشطة والموسمية. ومع ذلك، ظلّت البيئات شبه رطبة وتغطيها غابات دائمة الخضرة شبه مدارية. وكانت الباليوثيريات هي مجموعة مفردات الأصابع الأوروبية الوحيدة الباقية، وصارت مزدوجات الأصابع الآكلة للثمار والأوراق أو الآكلة للأوراق خالصةً المجموعةَ السائدة في أوروبا الغربية.
ومن ناحية أخرى، كما تسجّل MP16 نوعين مقصورين عليها هما و، وكلاهما مستوطن في المنطقة الإيبيرية. وتؤرِّخ MP17 الظهور المقصور لنوع إيبيري مستوطن آخر هو . وكانت الأنواع المستوطنة من باليوثيريوم من بين كثير من أصنوفات الباليوثيريات التي لا تُعرف إلا من المنطقة الإيبيرية.
كذلك، وتداخلت النطاقات الطبقية للأنواع المبكرة من باليوثيريوم كذلك مع الميتاثيريات (الهيربيتوثيريات )، والسيمولستيات (البانتولستيات والباروكسيكلينيات )، والقوارض (الإسكيروميات والثيريدومياوات والزغبيات )، والحشريات الحقيقية، والخفافيش، والأباتوثيريات، ولواحم الشكل (المياسيات )، والضباعانيات (الهيانايلورينات والبروفيفيرينات ). كما أنتجت مواقع أخرى من MP13–MP14 مستحاثات سلاحف وتماسيح الشكل، ومواقع MP13 هي طبقيًا الأحدث التي أنتجت بقايا فرعي الطيور الغاستورنيثيات وقديمات الفك .
إضافةً إلى ذلك، ويسجّل موقع إيغركينغن α + β، المؤرَّخ بـMP14، مستحاثات و و. ومن الأجناس الثديية الأخرى المسجَّلة في الموقع: الهيربيتوثيري ، والإسكيرومييان و، والسودوسكيوري ، والأوموميي ، والأداپي ، والبروفيفيري ، وباليوثيريات ( و و و)، والهيراكي ، واللوفيودونت ، والديكوبونيان و، والكويروبوتامي ، والأنوبلوثيري ، والأمفيميريسي ، والكيبوكويري ، والتابيرولي ، والميكستوثيري ، والسيفودونتان و.
إضافةً إلى ذلك، وتُؤرِّخ وحدة MP16 أول ظهور لعدة أنواع من باليوثيريوم في وسط أوروبا، وهي و و و، بعضها مقصور على الوحدة ( و)، وأحدها يبلغ فيها آخر ظهور له . ويسجّل موقع روبياك في فرنسا aff. وجميع الأنواع الآنفة الذكر من المنطقة في MP16، إلى جانب الهيربيتوثيريَّين و، والأباتيمي ، والنيكتيثيري ، والأوموميات ( و و)، والأداپي ، والإسكيرومي ، والزغبي ، والسودوسكيوري ، والثيريدوميَّين و، والضباعانيات ( و و)، ولواحم الشكل ( و و)، والكيبوكويريَّين و، والكويروبوتاميَّين و، والتابيرولي ، والأنوبلوثيريات ( و و)، والديكوبوني ، والروبياكيني ، والسيفودونتيات ( و و)، والأمفيميريسي ، واللوفيودونت ، والهيراكي ، وباليوثيريات أخرى ( و و و و و و).
الأوصاف الأولى
وعلى صعيد آخر، منذ سنة 1796، طوَّر عالم الطبيعة الفرنسي جورج كوفييه فكرة العوالم الغابرة للحيوانات المنقرضة، لكن بصيرته الإحاثية كانت محدودة في البداية لأن مشاهداته للمستحاثات اقتصرت غالبًا على الرسوم والمستحاثات المجزأة المحفوظة في المتحف الوطني للتاريخ الطبيعي. وفي سنة 1798، وثَّق مستحاثات من مونمارتر، مقترحًا في بادئ الأمر أنها قد تعود إلى الجنس الكلبي استنادًا إلى شكل الأسنان. ثم اقترح في العام ذاته أنها تعود إلى سميك جلد أوثق صلةً بالتابير وذي خرطوم مثله، وتبيَّن له أن حيوانات مونمارتر كانت أنواعًا متعددة مختلفة الأحجام وأعداد الأصابع. وقد نُسِبت إلى مستحاثات مونمارتر أهمية كبيرة في علم المتحجرات، إذ كانت مطمورة في طبقات رسوبية أعمق وأصلب تدل على قِدَمها، حتى عُدَّت دراستها «الميلاد الحقيقي لعلم المتحجرات».
وعلى صعيد آخر، في سنة 1782، وصف عالم الطبيعة الفرنسي روبير دو لامانون جمجمةً أحفوريةً تضم الفكين العلوي والسفلي، جُمِعت من محاجر مونمارتر، وهي تلة قرب باريس كانت ملكًا للنبيل فيليب-لوران دو جوبير. وأدرك أن الأضراس والقواطع تشبه إلى حد ما نظيراتها في المجترات، لكنه لاحظ أن الأسنان تفتقر إلى نظائر حديثة. ومن ثمّ افترض أن الحيوان منقرض، وذو نمط حياة برمائي، ويتغذى على النبات والسمك معًا.
التسمية
علاوةً على ذلك، الاسم العربي «باليوثيريوم» تعريب للاسم العلمي اللاتيني ، الذي صاغه جورج كوفييه عند إنشائه الجنس سنة 1804. والاسم مركب يوناني الأصل معناه «الوحش القديم»، من البادئة بمعنى «قديم» واللاحقة بمعنى «وحش» أو «حيوان بري».
ملاحظات
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟