الثالوث التحفيزي
المحتويات
- الوظيفة
- سيستئين-هستيدين-سيرين
- تغيّرات النيوكليوفيل
- ثالوثات مهندَسة
- بروتيازات الثريونين
- تغيّرات التفاعل
- سيستئين-هستيدين-أسبارتات
- سيرين-هستيدين-هستيدين
- الآلية
- التاريخ
- سيلينوسيستئين-هستيدين-غلوتامات
- الحمض
- القاعدة
- التطور التقاربي
- سيرين-غلوتامات-أسبارتات
- هيدرولازات السيستئين والسيرين
- الإنزيمات الكاذبة
- ثريونين-الطرف N، سيرين-الطرف N، وسيستئين-الطرف N
- التطور التباعدي
- سيرين-هستيدين-أسبارتات
- النيوكليوفيل
- سيرين-سيرين سيسي-ليسين
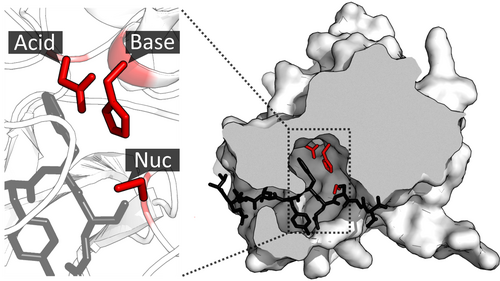
بدايةً، الثالوث الحفاز هو مجموعة من ثلاثة بقايا أحماض أمينية منسقة يمكن العثور عليها في الموقع النشط لبعض الإنزيمات. توجد الثالوثات الحفازة بشكل أكثر شيوعًا في إنزيمات الهيدرولاز والترانسفيراز (مثل البروتيازات والأميدازات والإستريزات والأسيلازات والليبازات وبيتا لاكتاماز). يُعد ثالوث حمض-قاعدة-نيوكليوفيل نمطًا شائعًا لتوليد بقية نيوكليوفيلية من أجل الحفز التساهمي. تشكّل البقايا شبكة تتابع شحنات لاستقطاب النيوكليوفيل وتنشيطه، الذي يهاجم الركيزة مكوّنًا وسيطًا تساهميًا يتحلل مائيًا فيما بعد لتحرير الناتج وإعادة تجديد الإنزيم الحر. النيوكليوفيل غالبًا ما يكون سيرين أو سيستئين، لكن أحيانًا يكون ثريونين أو حتى سيلينوسيستئين. تجمع البنية ثلاثية الأبعاد للإنزيم بقايا الثالوث في توجيه دقيق، حتى وإن كانت متباعدة في التسلسل (البنية الأولية). ونتناول فيما يلي مزيدًا من التفاصيل.
وفي هذا الصدد، إلى جانب التطور التباعدي للوظيفة (وحتى نيوكليوفيل الثالوث نفسه)، تُظهر الثالوثات الحفازة بعضًا من أفضل الأمثلة على التطور التقاربي. أدت القيود الكيميائية على الحفز إلى تطور نفس الحل الحفاز بشكل مستقل في 23 فصيلة عليا منفصلة على الأقل. ونتيجة لذلك تُعد آلية عملها من أكثر الآليات المدروسة في الكيمياء الحيوية.
الوظيفة
ومن جهة أخرى، تستعمل الإنزيمات التي تحتوي على ثالوث حفاز هذا الثالوث في أحد نوعين من التفاعلات: إما لتحليل ركيزة (الهيدرولازات) أو لنقل جزء من ركيزة إلى ركيزة ثانية (الترانسفيرازات). الثالوثات هي مجموعة مترابطة من البقايا في الموقع النشط للإنزيم تعمل بالتناغم مع بقايا أخرى (مثل موقع الارتباط وثقب الأنيون الأكسجيني) لتحقيق الحفز النيوكليوفيلي. تعمل بقايا الثالوث معًا لجعل عضو النيوكليوفيل شديد التفاعل، مولّدة وسيطًا تساهميًا مع الركيزة يُحلّ لاحقًا لإتمام الحفز.
سيستئين-هستيدين-سيرين
علاوةً على ذلك، يستعمل بروتياز فازوهيبين البطاني سيستئين كنيوكليوفيل، لكنه يستعمل سيرين لتنسيق قاعدة الهستيدين. وعلى الرغم من أن السيرين حمض ضعيف، إلا أنه يظل فعالًا في توجيه الهستيدين داخل الثالوث الحفاز. وتمتلك بعض المتماثلات ثريونين بدلًا من السيرين في موضع الحمض.
تغيّرات النيوكليوفيل
من جهة ثانية، ضمن الفصائل العليا للبروتيازات التي تحتوي على مزيج من النيوكليوفيلات (مثل فصيلة PA العليا)، تُصنَّف العائلات حسب نيوكليوفيلها الحفاز (C = بروتيازات سيستئين، S = بروتيازات سيرين).
من جانب آخر، يكون التطور التباعدي لبقايا الموقع النشط بطيئًا نظرًا للقيود الكيميائية القوية. ومع ذلك، تطورت بعض الفصائل العليا للبروتيازات من نيوكليوفيل إلى آخر. ويمكن استنتاج ذلك عندما تحتوي فصيلة عليا (تمتلك نفس الطية) على عائلات تستعمل نيوكليوفيلات مختلفة. وقد حدثت مثل هذه التبديلات في النيوكليوفيل عدة مرات خلال التاريخ التطوري، إلا أن الآليات التي حدث بها ذلك لا تزال غير واضحة.
ثالوثات مهندَسة
كذلك، إلى جانب الأنواع الطبيعية للثالوثات الحفازة، استُخدمت هندسة البروتينات لإنشاء أشكال متنوعة من الإنزيمات تحتوي على أحماض أمينية غير طبيعية، أو أحماض أمينية اصطناعية بالكامل. كما أُدخلت ثالوثات حفازة في بروتينات غير حفازة أصلًا، أو في متماثلات بروتينية.
في هذا الإطار، استُبدل النيوكليوفيل الأكسجيني في سبتيليسين (وهو بروتياز سيرين) بكل من الكبريت، والسيلينيوم، أو التيلوريوم. أُدخل السيستئين والسيلينوسيستئين عن طريق الطفرة الموجهة، بينما أُدخل الحمض الأميني غير الطبيعي، تيلوروسيستئين، باستخدام خلايا غذائية النمو أُغذيت بتيلوروسيستئين اصطناعي. وتقع هذه العناصر جميعها في العمود الدوري السادس عشر (الكالكوجينات)، لذا تتشارك خواص متشابهة. وفي كل حالة، أدى تغيير النيوكليوفيل إلى خفض نشاط الإنزيم كبروتياز، لكنه زاد من نشاط جديد. فقد حسّن النيوكليوفيل الكبريتي نشاط الإنزيم كترانسفيراز (يُطلق عليه أحيانًا subtiligase). وحوّلت نيوكليوفيلات السيلينيوم والتيلوريوم الإنزيم إلى أوكسيدوردكتاز. وعندما حُوّل نيوكليوفيل بروتياز TEV من سيستئين إلى سيرين، انخفض نشاطه كبروتياز بشدة، إلا أنه أمكن استعادته عبر التطور الموجَّه.
كذلك، استُخدمت بروتينات غير حفازة كسقالات، أُدخلت فيها ثالوثات حفازة تم تحسينها لاحقًا عبر التطور الموجَّه. فقد أُدخل ثالوث سيرين-هستيدين-أسبارتات في جسم مضاد، وكذلك في مجموعة من البروتينات الأخرى. وبالمثل، أُنشئت متماثلات للثالوث الحفاز في جزيئات عضوية صغيرة مثل ثنائي سيلينيد ثنائي الأريل، وعُرضت على بوليمرات أكبر مثل راتنجات ميريفيلد، وبنى نانوية ذاتية التجمع من ببتيدات قصيرة.
بروتيازات الثريونين
علاوةً على ذلك، من المعروف أن فصيلتين عليا مستقلتين تطوريًا وبطيتين بروتينيتين مختلفتين تستعملان البقية الطرفية N كنيوكليوفيل: الفصيلة العليا PB (البروتيازومات المستعملة لطية Ntn) والفصيلة العليا PE (أسيتيل ترانسفيرازات تستعمل طية DOM) وهذا التشابه في بنية الموقع النشط ضمن طيّات بروتينية مختلفة تمامًا يشير إلى أن الموقع النشط تطور بشكل تقاربي في هاتين الفصيلتين العليا.
- عائلات بروتيازات الثريونين
- انظر كذلك
- تحفيز إنزيمي
- المراجع
- ملاحظات
ومن ناحية أخرى، تستعمل بروتيازات الثريونين الحمض الأميني ثريونين كنيوكليوفيل حفاز. وخلافًا للسيستئين والسيرين، يُعد الثريونين هيدروكسيلًا ثانويًا (أي يحتوي على مجموعة ميثيل). وتقيّد مجموعة الميثيل هذه بشدة التوجيهات الممكنة للثالوث والركيزة، إذ يتصادم الميثيل إما مع العمود الفقري للإنزيم أو مع قاعدة الهستيدين. وعندما حُوّل نيوكليوفيل بروتياز سيرين بالطفرة إلى ثريونين، شغل الميثيل مزيجًا من المواضع، أغلبها منع ارتباط الركيزة. وبالتالي، تقع البقية الحفازة لبروتياز الثريونين عند طرفه N.
تغيّرات التفاعل
وفي هذا السياق، تؤدي الثالوثات الحفازة الحفز التساهمي عبر وسيط أسيل-إنزيم. وإذا تحلل الوسيط بواسطة الماء، تكون النتيجة تحللًا مائيًا للركيزة. أما إذا تحلل الوسيط بهجوم ركيزة ثانية، فإن الإنزيم يعمل كترانسفيراز. فمثلًا، يؤدي هجوم مجموعة أسيل إلى تفاعل أسيل ترانسفيراز. وقد تطورت عدة عائلات من إنزيمات الترانسفيراز من الهيدرولازات عبر التكيف لاستبعاد الماء وتفضيل هجوم ركيزة ثانية. وفي أعضاء مختلفين من الفصيلة العليا لهيدرولازات ألفا/بيتا، يُضبط ثالوث سيرين-هستيدين-أسبارتات بواسطة البقايا المحيطة لأداء 17 تفاعلًا مختلفًا على الأقل. وتُحقَّق بعض هذه التفاعلات كذلك بآليات ذات تكوين أو تحلل مختلف لوسيط الأسيل-إنزيم، أو لا تمر أصلًا عبر وسيط أسيل-إنزيم.
في هذا الإطار، فضلًا عن ذلك، تطورت آلية ترانسفيراز بديلة في إنزيم أميدوفوسفوريبوسيل ترانسفيراز، الذي يمتلك موقعين نشطين. ففي الموقع النشط الأول، يحلل ثالوث سيستئيني ركيزة غلوتامين مائيًا لتحرير أمونيا حرة. ثم تنتشر الأمونيا عبر نفق داخلي في الإنزيم إلى الموقع النشط الثاني، حيث تُنقل إلى ركيزة ثانية.
سيستئين-هستيدين-أسبارتات
ومن جهة أخرى، ثاني أكثر الثالوثات دراسة هو نمط سيستئين-هستيدين-أسبارتات. تستعمل عدة عائلات من بروتيازات السيستئين هذا الثالوث، مثل بروتياز TEV والبابين. يعمل هذا الثالوث بشكل مشابه لثالوثات بروتيازات السيرين، مع بعض الفروق الملحوظة. ونظرًا لانخفاض ثابت التفكك الحمضي للسيستئين، تتفاوت أهمية الأسبارتات في الحفز، وتُعد عدة بروتيازات سيستئين في الواقع ثنائيات سيستئين-هستيدين (مثل بروتياز فيروس التهاب الكبد A)، بينما في حالات أخرى يكون السيستئين منزوع البروتون بالفعل قبل بدء الحفز (مثل البابين). ويُستعمل هذا الثالوث كذلك من قبل بعض الأميدازات، مثل N-glycanase، لتحليل روابط C-N غير الببتيدية مائيًا.
سيرين-هستيدين-هستيدين
في هذا الإطار، يستعمل ثالوث بروتياز الفيروس المضخم للخلايا الهستيدين كعضوَي الحمض والقاعدة معًا. ويؤدي إزالة هستيدين الحمض إلى فقدان النشاط بمقدار 10 أضعاف فقط (مقارنة بأكثر من 10,000 ضعف عند إزالة الأسبارتات من الكيموتربسين). فُسِّر هذا الثالوث كطريقة محتملة لتوليد إنزيم أقل نشاطًا للتحكم في معدل الانشطار.
الآلية
هوية أعضاء الثالوث
إضافةً إلى ذلك، تؤدي الثالوثات الحفازة الحفز التساهمي باستخدام بقية كنيوكليوفيل. تزداد تفاعلية البقية النيوكليوفيلية بفضل المجموعات الوظيفية لأعضاء الثالوث الآخرين. يُستقطب النيوكليوفيل ويُوجَّه بواسطة القاعدة، التي بدورها ترتبط وتُثبَّت بواسطة الحمض.
وفي السياق ذاته، يتم الحفز على مرحلتين. أولًا، يهاجم النيوكليوفيل المنشَّط كربون الكربونيل ويُجبر أكسجين الكربونيل على قبول زوج إلكتروني، مما يؤدي إلى تكوّن وسيط رباعي السطوح. عادةً ما يُثبَّت التراكم الناتج من الشحنة السالبة بواسطة ثقب أنيون أكسجيني داخل الموقع النشط. ثم ينهار الوسيط عائدًا إلى مجموعة كربونيل، طاردًا النصف الأول من الركيزة، لكنه يترك النصف الثاني مرتبطًا تساهميًا بالإنزيم كوسيط أسيل-إنزيم. وعلى الرغم من إمكانية حدوث الحفز الحمضي العام لتحلل الوسيط الرباعي السطوح الأول والثاني عبر المسار الموضح في المخطط، فإن الأدلة الداعمة لمثل هذه الآلية مع الكيموتربسين كانت محل جدل.
في هذا الإطار، المرحلة الثانية من الحفز هي تحلل وسيط الأسيل-إنزيم عبر هجوم ركيزة ثانية. إذا كانت الركيزة هي الماء، ينتج التحلل المائي؛ أما إذا كانت جزيئًا عضويًا، فيُنقل ذلك الجزيء إلى الركيزة الأولى. يؤدي هجوم الركيزة الثانية إلى تكوّن وسيط رباعي السطوح جديد، يتحلل بطرد نيوكليوفيل الإنزيم، محررًا الناتج الثاني ومعيدًا تجديد الإنزيم الحر.
التاريخ
ومن ناحية أخرى، أجرى الباحثون منذ ذلك الحين دراسات متزايدة التفصيل حول آلية الحفز الدقيقة للثالوث. وكان من أبرز نقاط الجدل في التسعينيات والألفينيات ما إذا كان الترابط الهيدروجيني منخفض الحاجز يساهم في الحفز، أم أن الترابط الهيدروجيني العادي كافٍ لتفسير الآلية. وقد جعل الكمّ الهائل من الأعمال المتعلقة بتتابع الشحنة والحفز التساهمي الذي تستعمله الثالوثات الحفازة من هذه الآلية أفضل الآليات توصيفًا في الكيمياء الحيوية بأكملها.
وفي هذا الصدد، في خمسينيات القرن العشرين، حُدد وجود بقية سيرين كنيوكليوفيل حفاز في تربسين وكيموتربسين (اللذين نُقيا لأول مرة في ثلاثينيات القرن العشرين) عن طريق التعديل بثنائي إيزوبروبيل فلوروفوسفات. حُلّت بنية الكيموتربسين بواسطة التبلور بالأشعة السينية في ستينيات القرن العشرين، مما أظهر توجيه الثالوث الحفاز في الموقع النشط. جرى تسلسل بروتيازات أخرى ومحاذاتها لكشف وجود عائلة من البروتيازات المرتبطة، والتي تُعرف الآن بعائلة S1. وفي الوقت نفسه، وُجد أن بروتيازي البابين والسبتيليسين، غير المرتبطين تطوريًا، يحتويان على ثالوثات مماثلة وظيفيًا. اقتُرحت آلية "تتابع الشحنة" لتنشيط النيوكليوفيل بواسطة عضوي الثالوث الآخرين في أواخر ستينيات القرن العشرين. ومع حل مزيد من بنى البروتيازات بواسطة التبلور بالأشعة السينية في السبعينيات والثمانينيات، وُجدت ثالوثات متماثلة (مثل بروتياز TEV) وأخرى متشابهة وظيفيًا (مثل البابين). بدأ نظام تصنيف MEROPS في التسعينيات والألفينيات بتصنيف البروتيازات إلى فصائل عليا من الإنزيمات المرتبطة بنيويًا، وبذلك أصبح بمثابة قاعدة بيانات للتطور التقاربي للثالوثات في أكثر من 20 فصيلة عليا. وقد تطور في العقد الثاني من الألفية الثالثة فهم كيفية تسبب القيود الكيميائية على التطور في تقارب الكثير من عائلات الإنزيمات نحو نفس هندسات الثالوث.
سيلينوسيستئين-هستيدين-غلوتامات
وعلى صعيد آخر، يمكن كذلك العثور على الحمض الأميني النادر، لكن الموجود طبيعيًا، سيلينوسيستئين (Sec) كنيوكليوفيل في بعض الثالوثات الحفازة. يشبه السيلينوسيستئين السيستئين، لكنه يحتوي على ذرة سيلينيوم بدلًا من الكبريت. تُوجد بقية سيلينوسيستئين في الموقع النشط لريدكتاز الثيوريدوكسين، الذي يستعمل مجموعة السيلينول لاختزال ثنائي الكبريتيد في الثيوريدوكسين.
الحمض
من جانب آخر، تشكّل بقية الحمض في الثالوث رابطة هيدروجينية مع البقية القاعدية، مما يؤدي إلى محاذاة متبادلة عبر تقييد دوران السلسلة الجانبية للبقية القاعدية. وفي الوقت نفسه، تُثبَّت الشحنة الموجبة على البقية القاعدية، مما يؤدي إلى استقطابها. يمتلك حمضان أمينيان سلاسل جانبية حمضية عند الأس الهيدروجيني الفسيولوجي (الأسبارتات أو الغلوتامات)، لذا فهما الأكثر شيوعًا كبقية الحمض في الثالوث. يستعمل بروتياز الفيروس المضخم للخلايا زوجًا من الهستيدينات، أحدهما كقاعدة كالمعتاد، والآخر كحمض. الهستيدين الثاني ليس حمضًا فعالًا كما هو الحال مع الأسبارتات أو الغلوتامات الأكثر شيوعًا، مما يؤدي إلى كفاءة حفزية أقل.
أمثلة على الثالوثات
القاعدة
ومن جهة أخرى، القاعدة الأكثر شيوعًا هي الهستيدين لأن ثابت تفككه الحمضي يسمح بحفز قاعدي فعّال، وترابط هيدروجيني مع بقية الحمض، ونزع بروتون البقية النيوكليوفيلية. تستعمل بيتا لاكتامازات مثل TEM-1 بقية ليسين كقاعدة. ونظرًا لأن ثابت التفكك الحمضي لليسين مرتفع للغاية (pKa=11)، فإن غلوتامات وعدة بقايا أخرى تعمل كحمض لتثبيت حالته منزوعة البروتون خلال الدورة الحفازة. تستعمل بروتيازات الثريونين أميدها الطرفي N كقاعدة، لأن الازدحام الفراغي الناتج عن مجموعة ميثيل الثريونين الحفازة يمنع بقايا أخرى من الاقتراب بما يكفي.
علاوةً على ذلك، نظرًا لعدم وجود حمض أميني طبيعي شديد النيوكليوفيلية، فإن القاعدة في الثالوث الحفاز تستقطب النيوكليوفيل وتنزع بروتونه لزيادة تفاعليته. إضافة إلى ذلك، تقوم ببروتنة الناتج الأول للمساعدة في مغادرة المجموعة المغادرة.
التطور التقاربي
وعلى صعيد آخر، يقدّم علم الإنزيمات الخاص بالبروتيازات بعضًا من أوضح الأمثلة المعروفة على التطور التقاربي على المستوى الجزيئي. ويحدث نفس الترتيب الهندسي لبقايا الثالوث في أكثر من 20 فصيلة عليا منفصلة من الإنزيمات. وكل من هذه الفصائل العليا هي نتيجة تطور تقاربي نحو نفس ترتيب الثالوث ضمن طية بنيوية مختلفة. ويعود ذلك إلى وجود طرق محدودة لترتيب بقايا الثالوث الثلاث والعمود الفقري للإنزيم والركيزة بشكل منتج. وتعكس هذه الأمثلة القيود الكيميائية والفيزيائية الجوهرية على الإنزيمات، مما يجعل التطور يتقارب مرارًا وبشكل مستقل نحو حلول متكافئة.
سيرين-غلوتامات-أسبارتات
كذلك، يوجد ثالوث غير معتاد في بروتيازات سيدوليسين. ثابت التفكك الحمضي المنخفض لمجموعة كربوكسيلات الغلوتامات يعني أنها لا تعمل كقاعدة في الثالوث إلا عند الأس الهيدروجيني المنخفض للغاية. يُفترض أن هذا الثالوث تكيّف مع بيئات محددة مثل الينابيع الحارة الحمضية (مثل كوماموليسين) أو الليزوزوم الخلوي (مثل ببتيداز ثلاثي الببتيد).
هيدرولازات السيستئين والسيرين
عائلات بروتيازات السيستئين
ومن ناحية أخرى، تقاربت نفس هندسات الثالوث في بروتيازات سيرين مثل فصيلتي الكيموتربسين والسبتيليسين العليا. وحدث تقارب تطوري مماثل مع بروتيازات سيستئين مثل فصيلتي بروتياز C3 الفيروسي والبابين العليا. وقد تقاربت هذه الثالوثات إلى ترتيب شبه متطابق بسبب أوجه التشابه الآلي بين آليات التحلل البروتيني الخاصة بالسيستئين والسيرين.
عائلات بروتيازات السيرين
الإنزيمات الكاذبة
وفي هذا الصدد، توجد فئة فرعية أخرى من متغيرات الثالوث الحفاز هي الإنزيمات الكاذبة، التي تحمل طفرات في الثالوث تجعلها غير فعالة حفازيًا، لكنها قادرة على العمل كبروتينات ارتباط أو بروتينات بنيوية. فمثلًا، بروتين أزوروسيدين المرتبط بالهيبارين هو أحد أعضاء فصيلة PA العليا، لكنه يحتوي على غليسين بدلًا من النيوكليوفيل وسيرين بدلًا من الهستيدين. وبالمثل، فإن RHBDF1 هو متماثل من عائلة S54 لبروتيازات الرومبويد يحتوي على ألانين بدلًا من السيرين النيوكليوفيلي. وفي بعض الحالات، قد تحتفظ الإنزيمات الكاذبة بثالوث حفاز سليم، لكن طفرات في بقية البروتين تزيل النشاط الحفاز. تحتوي فصيلة CA العليا على أعضاء غير فعالين حفازيًا بثالوثات متحورة (يحتوي كالبامودولين على ليسين بدلًا من نيوكليوفيل السيستئين) وعلى أعضاء بثالوثات سليمة لكن بطفرات معطِّلة في مواضع أخرى (يحتفظ testin الجرذ بثالوث سيستئين-هستيدين-أسباراجين).
ثريونين-الطرف N، سيرين-الطرف N، وسيستئين-الطرف N
علاوةً على ذلك، تستعمل بروتيازات الثريونين، مثل وحدة بروتياز البروتيازوم وناقلات الأسيل للأورنيثين الهيدروكسيل الثانوي للثريونين بطريقة مشابهة لاستخدام الهيدروكسيل الأولي للسيرين. ومع ذلك، وبسبب التداخل الفراغي لمجموعة الميثيل الإضافية في الثريونين، يكون عضو القاعدة في الثالوث هو الأميد الطرفي N، الذي يستقطب جزيء ماء منظمًا يقوم بدوره بنزع بروتون الهيدروكسيل الحفاز لزيادة تفاعليته. وبالمثل، توجد تشكيلات مماثلة "سيرين فقط" و"سيستئين فقط" مثل أسيلاز البنسلين G وأسيلاز البنسلين V المرتبطين تطوريًا ببروتيازات البروتيازوم. وهذان كذلك يستعملان أميدهما الطرفي N كقاعدة.
التطور التباعدي
ومن جهة أخرى، تؤدي درجة تعقيد شبكة الموقع النشط إلى محافظة تطورية عالية على البقايا المشاركة في الحفز (والبقايا المتصلة بها). ومع ذلك، توجد أمثلة عديدة على التطور التباعدي في الثالوثات الحفازة، سواء في التفاعل المحفَّز أو في البقايا المستعملة في الحفز. ويظل الثالوث نواة الموقع النشط، لكنه يتكيف تطوريًا لأداء وظائف مختلفة. ولبعض البروتينات، التي تسمى الإنزيمات الكاذبة، وظائف غير حفازة (مثل التنظيم عبر الارتباط التثبيطي)، وقد تراكمت فيها طفرات تُبطل ثالوثها الحفاز.
سيرين-هستيدين-أسبارتات
من جانب آخر، وقد تطور نفس الثالوث بشكل تقاربي كذلك في هيدرولازات ألفا/بيتا مثل بعض الليبازات والإستريزات، إلا أن توجيه أعضاء الثالوث فيها معكوس. إضافة إلى ذلك، وُجد أن هيدرولاز الأسيتيل الدماغي (الذي يمتلك نفس طية بروتين G الصغير) يحتوي كذلك على هذا الثالوث.
إضافةً إلى ذلك، يُعد نمط سيرين-هستيدين-أسبارتات واحدًا من أكثر الأنماط الحفازة توصيفًا في الكيمياء الحيوية. ويُمثَّل هذا الثالوث بالكيموتربسين، وهو بروتياز سيرين نموذجي من فصيلة PA العليا يستعمل ثالوثه لتحليل العمود الفقري للبروتينات مائيًا. ترتبط الأسبارتات بروابط هيدروجينية مع الهستيدين، مما يرفع ثابت التفكك الحمضي لنيتروجين الإيميدازول فيه من 7 إلى نحو 12. وبذلك يصبح الهستيدين قادرًا على العمل كقاعدة عامة قوية، تنشّط نيوكليوفيل السيرين. تساعد قاعدة الهستيدين المجموعة المغادرة الأولى بمنحها بروتونًا، كما تنشّط ركيزة الماء المحلِّلة مائيًا بنزع بروتون منها بينما يهاجم أيون OH− المتبقي وسيط الأسيل-إنزيم.
النيوكليوفيل
من جانب آخر، يتسبب استخدام الأكسجين أو الكبريت كذرة نيوكليوفيلية في فروق طفيفة بالحفز. مقارنة بالأكسجين، فإن مدار d الإضافي للكبريت يجعله أكبر (بمقدار 0.4 أنغستروم) وأكثر ليونة، مما يسمح له بتكوين روابط أطول (dC-X وdX-H بمقدار 1.3 ضعفًا)، ويمنحه ثابت تفكك حمضي أقل (بمقدار 5 وحدات). لذا فإن السيرين يعتمد بشكل أكبر من السيستئين على التوجيه الأمثل لأعضاء ثالوث الحمض-القاعدة لخفض ثابت تفككه الحمضي من أجل تحقيق نزع بروتون متزامن مع الحفز. ويعمل ثابت التفكك الحمضي المنخفض للسيستئين لصالحه في تحلل الوسيط الرباعي السطوح الأول، إذ يكون الانعكاس غير المنتج للهجوم النيوكليوفيلي الأصلي هو ناتج التحلل الأكثر تفضيلًا. لذا فإن قاعدة الثالوث تُوجَّه تفضيليًا لبروتنة مجموعة الأميد المغادِرة لضمان طردها بحيث يبقى كبريت الإنزيم مرتبطًا تساهميًا بالطرف N للركيزة. وأخيرًا، يتطلب تحلل الأسيل-إنزيم (لتحرير الطرف C للركيزة) إعادة بروتنة السيرين بينما يمكن للسيستئين أن يغادر كـ S−. ومن الناحية الفراغية، يشكل كبريت السيستئين كذلك روابط أطول وله نصف قطر فان دير فالس أكبر حجمًا، وإذا حُوّل بالطفرة إلى سيرين يمكن أن يُحتجز في توجيهات غير منتجة داخل الموقع النشط.
في هذا الإطار، نادرًا جدًا، تُستعمل ذرة السيلينيوم في الحمض الأميني غير الشائع سيلينوسيستئين كنيوكليوفيل. وتُفضَّل حالة Se− منزوعة البروتون بقوة عندما تكون ضمن ثالوث حفاز.
من جهة ثانية، تؤدي السلسلة الجانبية للبقية النيوكليوفيلية الحفز التساهمي على الركيزة. يهاجم الزوج الإلكتروني الحر الموجود على الأكسجين أو الكبريت كربون الكربونيل الموجب الكهربية. لا تحتوي الأحماض الأمينية العشرون الطبيعية على مجموعات وظيفية نيوكليوفيلية بالقدر الكافي للعديد من التفاعلات الحفازة الصعبة. يزيد تضمين النيوكليوفيل ضمن ثالوث من تفاعليته لتحقيق حفز فعّال. النيوكليوفيلات الأكثر استخدامًا هي مجموعة الهيدروكسيل (OH) للسيرين ومجموعة الثيول/أيون الثيولات (SH/S−) للسيستئين. بدلًا من ذلك، تستعمل بروتيازات الثريونين الهيدروكسيل الثانوي للثريونين، ولكن بسبب الإعاقة الفراغية الناتجة عن مجموعة الميثيل الإضافية في السلسلة الجانبية، تستعمل هذه البروتيازات أميدها الطرفي N بوصفه القاعدة بدلًا من حمض أميني منفصل.
سيرين-سيرين سيسي-ليسين
وفي هذا الصدد، يحدث هذا الثالوث غير المعتاد فقط في فصيلة عليا واحدة من الأميدازات. هنا، يعمل الليسين على استقطاب السيرين الأوسط. ثم يشكّل السيرين الأوسط رابطتين هيدروجينيتين قويتين مع السيرين النيوكليوفيلي لتنشيطه (إحداهما مع الهيدروكسيل في السلسلة الجانبية والأخرى مع أميد العمود الفقري). ويوجد السيرين الأوسط في توجيه سيسي غير معتاد لتسهيل التماسات الدقيقة مع بقية أعضاء الثالوث. ويتميز هذا الثالوث كذلك بأن الليسين والسيرين السيسي يعملان معًا كقاعدة في تنشيط السيرين الحفاز، لكن نفس الليسين يؤدي كذلك دور عضو الحمض إلى جانب إقامة تماسات بنيوية أساسية.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟